1
понятия КЛЕТОЧНОЙ ФИЗИОЛОГИИ
1771—Л. Гальвани (L. Galvani, Италия) в
«Трактате о силах электричества при мышечном движении» доказал существование
так называемого животного электричества.
1822 — Ф. Мажанди
(F. Magendie, Франция) доказал раздельное
существование чувствительных и двигательных нервов.
1840— К. Маттеучи
(К. Matteuci, Италия) получил первое доказательство электрической
природы нервного импульса. В 1845 г. он применил нервно—мышечный препарат в
качестве чувствительного биологического индикатора существования токов в других
сокращающихся мышцах.
1848— Э. Дюбуа—Реймон (Е. Dubois—Reymond, Германия) разработал методы
раздражения ткани (индукционная катушка) и регистрации ответов (гальванометр),
доказал существование потенциала покоя и потенциала действия.
1850— Г.
Гельмгольц (Н. Helmholtz, Германия) измерил скорость распространения нервного
импульса по нерву лягушки, а в 1867—1871 гг. вместе с русским ученым Н. Бакстом
произвел это измерение у человека.
1851— Э. Пфлюгер
(Е. Pfluger, Германия) показал, что усиление раздражения рецепторов
вызывает изменение рефлекторных ответов — иррадиацию возбуждения в нервных
центрах.
1856 — Р. Вирхов (R. Virchow, Германия) открыл существование
нейроглии.
1859— Э. Пфлюгер
открыл закономерности действия постоянного тока на нерв и мышцу, что положило
начало учению о физиологическом электротоне.
1862 — И. М.
Сеченов (Россия) открыл явление центрального торможения.
1865 — О. Дейтерс
(О. Deiters, Германия) описал дендриты и аксоны нервных клеток.
1873— К. Гольджи
(С. Golgi, Италия) разработал способ окраски и метод приготовления препаратов
нервных клеток.
1874—Л. Ранвье (L. Ranvier, Франция) описал красные и белые
мышечные волокна и исследовал их функции.
1879— Л.
Германн (L. Hermann, Германия) сформулировал теорию альтерации, которая
объясняет проведение нервного импульса и изменения, возникающие во всей
аксоплазме и особенно в ее белковых структурах.
1883— Н. Е.
Введенский (Россия) доказал колебательную природу возбуждения в нерве. В 1884
г. с помощью телефонного аппарата прослушал возбуждение в нерве. Ввел понятие
лабильности возбудимой ткани.
1883— Б. Ф. Вериго (Россия) установил закономерность изменения возбудимости
при длительном действии постоянного тока (катода) на возбудимую ткань
(католическая депрессия Вериго).
1890—С.
Рамони—Кахаль (S. Ramon у Cajal, Испания) и А. Ван—Гехухтен (A. Van Gehuchten, Бельгия) разработали представление
о работе нейрона — «закон динамической поляризации».
1891— Г.
Вальдейер (Н. Waldeyer, Германия) подтвердил применимость клеточной теории к
нервной системе, предложил назвать нервную клетку «нейрон».
1895—А. Ф. Самойлов (Россия) экспериментально доказал гуморальную природу
центрального торможения.
1896—В. Ю. Чаговец (Россия) предложил первую ионную теорию
биоэлектрических явлений. Экспериментально обосновал
теорию
раздражающего действия электрического тока.
1897— Ч.
Шеррингтон (Ch. Sherrington, Великобритания) сформулировал представление о синапсах и
определил их значение в механизмах нервно—мышечной передачи.
1901— 1906 — Дж.
Горвег (J. Hoorweg, Голландия), Г. Вейсс (G. Weiss, Германия), Л. Лапик (L. Lapique, Франция) доказали зависимость
пороговой силы раздражителя от его длительности.
1901— Н. Е.
Введенский в монографии «Возбуждение, торможение и наркоз» развил представления
о единстве природы процессов торможения и возбуждения, изложил суть учения о
парабиозе.
1906—К. Гольджи и
С. Рамони—Кахаль — Нобелевская премия за работы по изучению нервной системы.
1910— А. Коссель (A. Kossel, Германия) — Нобелевская премия за
исследования роли белков и нуклеиновых кислот в жизнедеятельности клетки.
Установил, что хромосомы состоят из нуклеиновых кислот и белков (гистонов).
Предположил, что химической основой передачи наследственной информации может
быть структура белка. Открыл несколько аминокислот.
1910—1930 — Ч.
Шеррингтон вскрыл механизм координационных отношений в нервной системе и
механизм реципрокного торможения, ввел понятие «рецептивное поле», принцип
общего конечного пути, разработал принцип конвергенции и дивергенции в строении
нервных центров.
1921— О. Леви (О.
Loewi, Австрия)
установил химическую природу передачи возбуждения через синапсы и роль в ней
ацетилхолина — Нобелевская премия 1936 г. совместно с Г. Дейлом (Н. Dale, Великобритания).
1921—1942 — А. А. Ухтомский (СССР) исследовал
процессы возбуждения, торможения и механизмы лабильности. Создал учение о
доминанте.
1922—Г. Гассер
(Н. Gasser, США) и Д. Эрлангер (D. Erianger, США) применили электроннолучевой
осциллограф и впервые наблюдали электрические потенциалы действия в
периферических нервах. В 1933 г. они же установили закономерность — скорость
проведения импульса возбуждения в нервном волокне прямо пропорциональна
диаметру его осевого цилиндра.
1933— Ч.
Шеррингтон и Э. Эдриан (Е. Adrian, Великобритания) — Нобелевская премия за открытие
роли рецепторов, чувствительных и двигательных нервов, передачи информации в
виде электрических импульсов.
1933—А. В.
Кибяков (СССР) установил роль адреналина в синаптической передаче.
1933— Т. Морган (Т. Morgan, США) — Нобелевская премия за
открытие функций хромосом как носителей наследственности.
1953— Дж. Эклс (J. Eccles, Австралия) описал ионные процессы,
происходящие при возбуждении концевой пластинки.
1959— С. Очоа (S. Ochoa, США) и А. Корнберг (A. Kornberg, США) — Нобелевская премия за
исследование биосинтеза ДНК и РНК.
1965— Ф. Крик (F. Crick, Великобритания), Дж. Уотсон (J. Watson, США) и М. Уилкинс (М. Wilkins, Великобритания) — Нобелевская
премия за открытие структуры нуклеиновых кислот и их роли в механизмах наследственности.
1963—Дж. Эклс, А.
Ходжкин (A. Hodgkin, Великобритания) и А.Хаксли (A. Huxley, Великобритания) — Нобелевская
премия за открытие ионных механизмов передачи возбуждения по нервному волокну.
1965— Ф. Жакоб (F. Jacob, Франция), А. Львов (A. Lwoff, Франция) и Ж. Моно (J. Monod, Франция) — Нобелевская премия за открытие
генетической регуляции синтеза ферментов.
1970— Б. Кац (В. Katz, Великобритания), У. фон Эйлер (U. v. Euler, Швеция) и Дж. Аксельрод (J. Axelrod, США) — Нобелевская премия за
открытие роли норадреналина в синаптической передаче.
1971—Э. Сазерленд
(Е. Sutherland, США) — Нобелевская премия за открытие вторичных
посредников, в частности цАМФ.
1974 — А. Клод (A. Claude, Бельгия), К. Де Дюв (Ch. de Duve, Бельгия) и Дж. Паладе (G. Palade, США) — Нобелевская премия за
открытие роли митохондрий, лизосом и рибосом.
1991— Э. Негер и
Б. Закманн (Е. Neher, В. Sakmann, Германия) — Нобелевская премия за
открытие функции отдельных ионных каналов в клетке.
1992—Э. Фишер, и Э. Кребс (Е. Fisher, Е. Krebs, США) — Нобелевская премия за
открытие обратимого фосфорилирования белков как регулярного механизма.
1994— А. Гилман и
М. Родбелл (A. Gilman, М. Rodbell, США) — Нобелевская премия за открытие G—белков и их роли в
передаче сигналов в клетке.
1995—Э. Льюис (Е. Lewis. США), К. Нюслин—Вольхард (Ch. Nusslein—Volhard, Германия) и Э. Вейсхаус (Е. Wieschaus, США) — Нобелевская премия за
открытия, касающиеся генетического контроля раннего эмбрионального развития.
Живым клеткам, как и многоклеточным
организмам, свойственны метаболизм, раздражимость, а в определенные периоды жизни
рост и размножение. Некоторые из этих свойств (метаболизм, рост и размножение)
подробно обсуждаются в курсах цитологии, биохимии, генетики и др.;
раздражимость — сугубо физиологическое понятие. Раздражимость (реактивность)
клеток — это их способность (свойство) активно отвечать на внешнее
воздействие той или иной формой деятельности, например, усилением метаболизма и
роста, ускорением деления, выбросом секрета, движением, электрическим
импульсом.
Реактивность живых клеток и
многоклеточных организмов отличается от пассивной реактивности неживых тел
(например, «реактивности» упругих тел в отношении действующих на них
механических сил). Это отличие состоит в том, что энергия для реакции клеток
возникает не за счет внешнего воздействия, а в результате внутриклеточных
метаболических процессов, запускаемых внешним воздействием. Поэтому энергия
(сила) и форма реакции клетки не определяются энергией (силой) внешнего
воздействия.
Реакция может быть в ряде случаев
пропорциональна действующей внешней силе, но и это не всегда так.
Среди различных форм клеточных
реакций на внешние воздействия т. е. на действие раздражителей выделяют
возбуждение. Возбуждением клетки часто называют реакцию, проявляющуюся в
особенно отчетливой внешней деятельности: в резком движении клетки (например,
ее сокращении), генерации электрического сигнала, выбросе секрета. Приведенное
определение понятия «возбуждение» можно назвать общебиологическим.
В специальной физиологической
литературе возбуждением иногда называют активный электрический ответ клетки
(так называемый потенциал действия), а сокращение и секрецию рассматривают как
следствие электрической реакции.
Клетки, способные к возбуждению, —
мышечные, нервные, железистые — называют возбудимыми. К возбудимым клеткам,
т. е. к обладающим возбудимостью, относятся и элементы сенсорных рецепторов —
нервные окончания и .специальные рецепторные клетки. Возбудимость всех этих
клеток обеспечивает реактивность макроорганизмов. Возбудимость обнаруживается и
у некоторых одноклеточных организмов.
В качестве внешних воздействий,
вызывающих возбуждение, могут выступать механические, химические, звуковые и
световые влияния. Для каждой возбудимой клетки весь набор внешних воздействий —
раздражителей — делится на две неравные части: адекватные и неадекватные
раздражители. Адекватный раздражитель соответствует данному виду клеток;
он вызывает возбуждение даже при очень малой энергии (дозе) воздействия. Таков
свет — для фоторецепторов, звук — для слуховых рецепторов, пахучие вещества —
для обонятельных рецепторов и т. д. Для нервных мышечных клеток многоклеточных
организмов адекватными раздражителями являются электрические токи и некоторые
химические агенты, продуцируемые другими клетками. Все прочие раздражители
называют неадекватными.
Минимальная энергия (сила)
раздражителя, необходимая для возбуждения клетки, называется пороговой
(порогом). В случае неадекватных раздражителей (например, механического
воздействия на фоторецепторы или нервные волокна) она на много порядков
превышает пороговую энергию для адекватных раздражителей. Возбудимость по
отношению к раздражителю измеряют порогом раздражения; возбудимость обратно
пропорциональна величине порога.
Возбуждение, возникнув в точке
действия раздражителя, во многих случаях способно распространяться, охватывая
всю клетку. Это тесно связано с электрическим ответом и имеет большое значение
в деятельности нервной системы и особенно ее проводящих путей (нервная
сигнализация).
Возбудимость является важной
особенностью любой живой ткани. Об этом свидетельствуют опыты Л. Гальвани,
проведенные им еще в конце XVII в. Помимо того, эти опыты явились началом для
электрохимической теории и представления о том, что живые ткани способны
вырабатывать электрический ток. На нервно—мышечных препаратах лягушки Л.
Гальвани обнаружил, что если к препарату приложить две соединенные между собой
пластинки из разных металлов (при этом одна из них располагается на мышце,
другая на нерве), то при касании металлов происходит сокращение мышцы. Л.
Гальвани объяснил этот эффект протеканием «животного электричества», которое,
по его мнению, зарождалось в нервах и запасалось в мышцах. Предполагалось, что
от мышцы к нерву через металлический проводник протекают некие «электрические
флюиды» и что именно этот разряд и вызывает сокращение мышцы. На самом деле
опыты Л. Гальвани не доказывали наличия «животного электричества», и тем не
менее они продемонстрировали высокую чувствительность возбудимых тканей к
чрезвычайно слабым электрическим токам.
Несколько позже итальянский физик и
физиолог Алессандро Вольта (1745—1827) повторил опыты Л. Гальвани и высказал
иное предположение. Он считал, что в подобных опытах электрический ток,
вызывающий сокращение мышцы, возникал совсем не в живых тканях, а в месте
контакта разных металлов с тканевыми жидкостями, представляющими собой
насыщенные солями растворы. Но это были всего лишь предположения. И только в
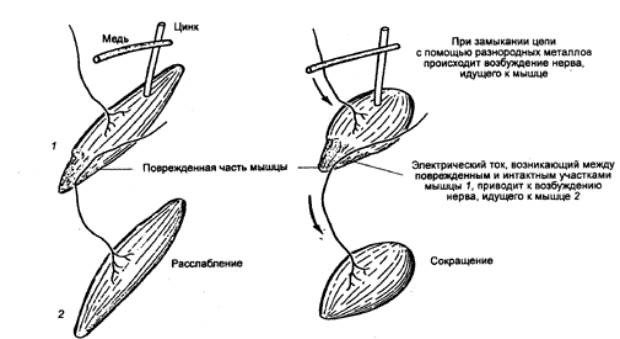
1840 г. Карло Маттеучи провел эксперимент, в котором один нервно—мышечный
препарат возбуждается током, возникающим при сокращении мышцы другого препарата
(рис. 1.1). Иными словами, ток, возникающий во время сокращения первой мышцы,
вызывает возбуждение нерва, идущего ко второй мышце. В свою очередь сокращение
первой мышцы было вызвано раздражением ее двигательного нерва с помощью тока, который
возникал в результате электролиза в паре разнородных металлов. Так было
экспериментально показано не только существование возбудимости, но и то, что в
возбудимых тканях возникают электрические токи.
|
|
|
Рис. 1.1 Опыт Маттеучи |
Возбудимым клеткам при отсутствии достаточных раздражителей
свойственно состояние физиологического покоя, которое, конечно, не равно
полной бездеятельности, ибо сопряжено с текущим метаболизмом.
Некоторые внешние воздействия могут вызывать в клетках
реакции с отрицательным знаком (уменьшение метаболизма, роста, возбудимости по
отношению к раздражителям). Такие реакции называют торможением.
Торможение может вызываться воздействиями из внешней среды и влияниями со
стороны других клеток организма.
Явление торможения — важный феномен, широко используемый в
процессах интеграции и координации клеточных функций в многоклеточном
организме.
1.1. ОБЩАЯ ФИЗИОЛОГИЯ НЕРВНОЙ СИСТЕМЫ
В организме человека и большинства
животных особую роль играют нервная система и мышцы. Нервная система
связывает между собой, объединяет (интегрирует) различные части многоклеточного
организма. Мышцы играют роль двигателей, обеспечивающих подвижность,
иначе говоря, активность организмов в их среде, а также механические функции
внутренних органов (сердца, легких, кишки и т. п. ). Универсальность и
чрезвычайная важность функций нервной системы и мышц, а также и то, что эти
образования и формирующие их клеточные элементы изучены особенно подробно,
оправдывает вынесение общих характеристик нервной системы и мышц в начало
данного курса.
1.1.1. Основные типы строения нервной системы
Основными типами строения нервной системы у разных
представителей животного мира являются диффузный, узловой (в частности,
цепочечный, разбросанно—узловой или лестничный) и трубчатый (рис. 1.2).
Диффузный тип нервной системы, присущий
низшим многоклеточным (например, кишечнополостным), характеризуется
приблизительно равномерным распределением нервных элементов во всем теле
животного. Узловой, характерный для высших беспозвоночных, имеет
концентрацию нервных элементов в узлах (особенно в подглоточном и
надглоточном), которые связаны
|
|
|
Рис. 1.2 Основные типы строения нервной системы А— диффузный (кишечнополостные); Б— цепочечный
(членистоногие); В — трубчатый
(центральная нервная система позвоночных). |
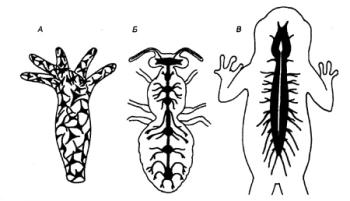
между собой коннективами, а с
остальными частями организма — периферическими нервами. Трубчатый тип
нервной системы характеризуется концентрацией нервных элементов в нервной трубке
(мозгу) и особенно в расширениях оральной части этой трубки (головном мозгу).
Этот тип присущ позвоночным, в том числе человеку. Головной и спинной мозг
связан с остальными частями организма с помощью многочисленных нервов.
Нервные клетки. Нервная система человека и животных состоит из нервных
клеток (нейронов), тесно связанных с глиальными клетками. Нервные
клетки у позвоночных и высших беспозвоночных имеют характерные отростки,
отходящие от тела (сомы, или перикариона), в котором находится клеточное ядро.
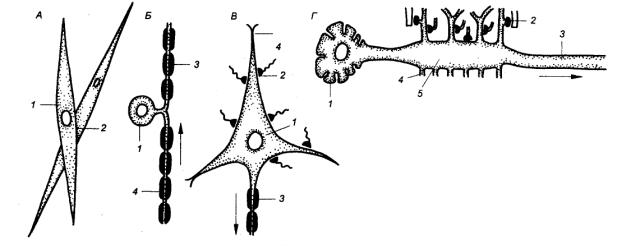
Различают два вида этих отростков: дендриты и аксоны
(рис. 1.3). По количеству отростков, отходящих от сомы, нейроны подразделяют на
униполярные (имеют один отросток, отходящий от сомы), биполярные (имеют два
отростка) и мультиполярные (имеют более двух отростков, отходящих от сомы).
Униполярные нейроны имеются у животных разных типов, особенно широко они
распространены у беспозвоночных, например, у моллюсков и насекомых. У этих
животных от тела нейрона отходит клеточный отросток, который переходит в так
называемый центральный отросток, порождающий аксон и дающий множество
дендритов. Мультиполярные клетки — это основной вид нейронов у
позвоночных. У низших беспозвоночных (кишечнополостных) нейроны обладают веретенообразной
формой.
Перикарионы нейронов обычно имеют размеры (диаметры) от 5 до 100 мкм.
Отростки нервных клеток у высших позвоночных и беспозвоночных, особенно аксоны
с диаметром от 1 до 6—10 мкм, могут быть очень длинными (до 1 м!). В особых
случаях при слиянии аксонов (например, у головоногих моллюсков) формируются гигантские
аксоны, диаметр которых может достигать 1 мм, что делает их очень удобными
для исследования.
Нейрон, как и все прочие клетки, снаружи покрыт непрерывной
оболочкой — плазматической мембраной (плазмалеммой). Она отделяет цитоплазму
клетки с включенными в нее многочисленными органоидами (ядром, аппаратом
Гольджи, митохондриями и т. п.) от внеклеточной жидкости.
С помощью аксонов и дендритов нейроны контактируют между
собой и с другими клетками, например с мышечными. Эти контакты имеют особое
строение и называются синапсами.
Существуют различные типы синапсов (по структуре, функции,
способу передачи сигнала, местоположению в системе и т. д.).
|
|
|
Рис. 1.3 Основные типы строения
нейронов А — веретенообразный (кишечнополостные); Б — псевдоуниполярный (сенсорный нейрон позвоночных); В — мультиполярный (позвоночные); Г — типичный нейрон центральной
нервной системы беспозвоночных: 1 —
сома, 2 — синапс, 3 — аксон, 4 — дендрит, 5 — центральный
отросток. Стрелками обозначено направление распространения возбуждения. |
|
|
|
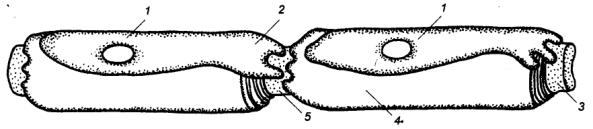
Рис. 1.4 Миелиновая «муфта» аксона позвоночного Шванновская
клетка «накручивается» на аксон и, теряя в намотанной части цитоплазму,
формирует из своей мембраны плотный многослойный миелиновый футляр; 1 — шванновская клетка (ядерная
часть, сохранившая цитоплазму), 2 — пальцеобразный
отросток шванновской клетки, 3 — аксон, 4 — миелин, 5 — перехват Ранвье. |
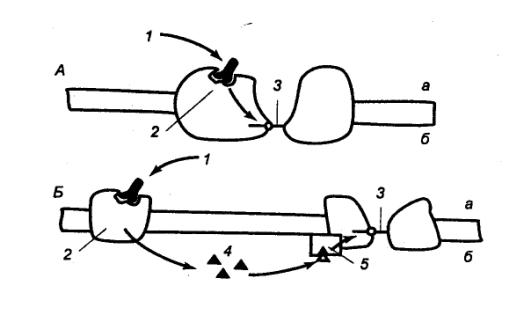
Чрезвычайно широко распространены так называемые химические
синапсы, в которых передача осуществляется с помощью специального
химического агента — локального передатчика—трансмиттера — медиатора,
выбрасываемого пресинаптическим нервным окончанием и действующего на постсинаптическую
клетку.
В составе нервной системы у позвоночных и беспозвоночных
находятся и нейросекреторные клетки (у позвоночных, например, в гипоталамусе).
Эти клетки вырабатывают нейрогормоны (физиологически активные вещества),
которые выделяются в кровоток и действуют на все чувствительные к ним клетки
организма (см. гл. 6).
Глиальные клетки. К глиальным клеткам (глиоцитам) относятся олигодендроциты,
астроциты, шванновские клетки и др. Они окружают нервные клетки и в некоторых
местах тесно соприкасаются с ними. Число глиальных клеток в нервной системе
примерно на порядок больше числа нейронов. Особую роль глиальные клетки играют
в формировании так называемых миелиновых оболочек аксонов. Миелиновые
оболочки формируются у позвоночных в ЦНС за счет отростков олигодендроцитов, а
на периферии — за счет так называемых шванновских клеток, или леммоцитов.
Эти клетки окутывают аксоны многослойными миелиновыми «муфтами» (рис. 1.4) так,
что большая часть аксона оказывается покрытой ими, а открытыми остаются узкие
участки между муфтами — перехваты узла, или перехваты Ранвье.
Последние у таких волокон имеют особое функциональное значение.
Функция нервных клеток. Функция нервных клеток состоит в передаче информации
(сообщений, приказов или запретов) с помощью нервных импульсов.
Нервные импульсы распространяются по отросткам нейронов и передаются через
синапсы (как правило, от аксонной терминали на сому или дендрит следующего
нейрона). Возникновение и распространение нервного импульса, а также его
синаптическая передача тесно связаны с электрическими явлениями на плазматической
мембране нейрона.
1.1.2. Мембранные потенциалы нервных
элементов
Для исследования электрических
явлений в нервных (и других) клетках широко применяют микроэлектроды
(стеклянные пипетки с очень тонким, примерно 0,5 мкм, кончиком), заполненные
электролитом. В таком микроэлектроде электролит играет роль проводника тока, а
стекло — изолятора. Если кончик микроэлектрода вводят внутрь клетки, то он
регистрирует внутриклеточный потенциал (относительно наружного
«индифферентного» электрода). В крупные нервные клетки (волокна) удается
вводить и проволочные электроды. С помощью внутриклеточных
|
|
|
Рис. 1.5 Регистрация мембранного потенциала
покоя
А — микроэлектрод /
еще не введен в нервное волокно; луч осциллографа показывает, что разность потенциалов
у микроэлектрода и индифферентного электрода 2 равна нулю; Б — микроэлектрод
введен в нервное волокно (прокол мембраны); он регистрирует постоянный
отрицательный потенциал относительно внешнего раствора — мембранный потенциал
покоя (МПП). |
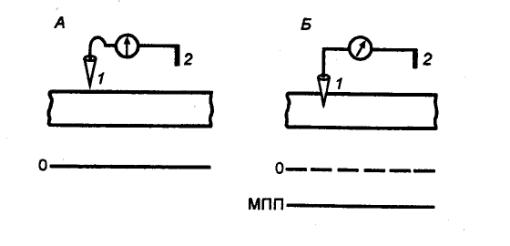
Мембранный потенциал покоя. У нейронов, как и у всех
исследованных клеток животных и растений, поверхностная мембрана в покое электрически
поляризована, т. е. имеет разный электрический потенциал наружной и
внутренней поверхностей. В этом можно убедиться, если ввести внутрь клетки
микроэлектрод, соединенный с регистрирующей установкой. Как только
микроэлектрод попадает внутрь клетки, он мгновенно приобретает некоторый
постоянный электроотрицательный потенциал по отношению к электроду,
расположенному в окружающей клетку жидкости.
Величина внутриклеточного
электрического потенциала у нервных клеток и волокон, например, гигантских
нервных волокон кальмара, в покое составляет около —70 мВ.
Эту величину называют мембранным
потенциалом покоя (МПП). Во всех точках аксоплазмы этот потенциал
практически одинаков.
При выведении кончика микроэлектрода
из клетки возвратным движением или прокалыванием ее насквозь разность
потенциалов между электродами скачкообразно исчезает (рис. 1.5).
Связь МПП с поляризацией
мембраны клетки доказывает, например, опыт по удалению аксоплазмы из
гигантского аксона кальмара. Лишенный аксоплазмы аксон при его перфузии солевым
раствором (сходным по ионному составу с аксоплазмой) обнаруживает примерно
такой же МПП, как и нормальный аксон.
Природа поляризации клеточной
мембраны сегодня в основном определена. Чтобы ее понять, необходимо рассмотреть
некоторые свойства самой мембраны, а также ионный состав внеклеточной среды и
внутриклеточной жидкости. Мембрана, например, у аксона кальмара, как и у
всех других клеток, — очень тонкая, но достаточно прочная оболочка. Согласно
электронно—микроскопическим данным ее толщина составляет 5—10 нм. В основу
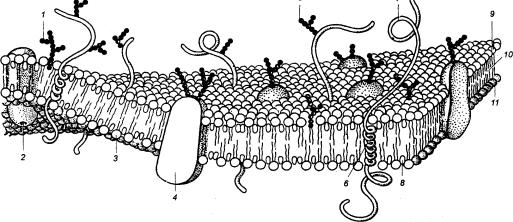
современных представлений о структуре мембран положена жидкостно—мозаичная
модель (рис. 1.6). Согласно этой модели в жидком липидном бислое плавают
глобулярные белки — интегральные и периферические. Одни из них являются ионными
каналами, другие (например, гликопротеиды) содержат олигосахаридные белковые
цепи, участвующие в узнавании клетками друг друга и межклеточной коммуникации.
Структура мембраны высокодинамична: липиды способны к латеральной и
вращательной диффузии, они могут переходить из одного монослоя в другой. Белкам
свойственна и вращательная диффузия. Однако часть белков иммобилизована
(«заякорена») структурами цитоскелета и не может свободно плавать. Стало быть,
жидкостно—мозаичная модель мембраны верна лишь частично.
В последние годы предложена
твердокаркасная жидкостно—мозаичная модель. В этой модели мембрана уподобляется
белковому каркасу, ячейки которого заполнены липидным бислоем. В формировании
непрерывного каркаса
|
|
|
Рис. 1.6 Трехмерная схема жидкостно—мозаичной модели
мембраны 1 — гликолипид, 2 — ионный канал, 3 — фосфолипид, 4 — интегральный белок, 5 —
олигосахаридная боковая цепь, б — гидрофобный участок α—спирали, 7 —
α—спиральная белковая молекула, 8
— холестерин, 9 —
наружная поверхность, 10 — липидная сердцевина, 11 — внутренняя поверхность. |
участвуют
внутримембранные белки, белки цитоскелета, прилегающие к внутренней поверхности
мембраны, а с наружной стороны — белки экстраклеточного матрикса: коллаген,
фиброкинин. Важным структурным компонентом мембран является вода. Особенности
взаимодействия основных молекулярных элементов с водой не только определяют
многие структурно—функциональные свойства мембранных систем, но и становятся
решающими в процессе их формирования и стабилизации.
В транспорте веществ через мембрану принято выделять два
типа — пассивный и активный транспорт. Пассивный транспорт — перенос
неэлектролитов и ионов через мембрану по градиенту химического или
электрохимического потенциала. Это может быть простая диффузия через липидный
бислой либо облегченная диффузия, осуществляемая переносчиками или по каналам в
мембране. Процессы облегченной и простой диффузии направлены на выравнивание
градиентов и установление равновесия в системе. Активный транспорт — перенос
неэлектролитов и ионов против градиента химического или электрохимического потенциала
сопряжен с энергетическими затратами. Основное отличие активного транспорта от
облегченной диффузии состоит в том, что одна из стадий активного транспорта
энергозависима. Когда для переноса вещества используется энергия
аденозинтрифосфата (АТФ) или окислительно—восстановительных реакций, транспорт
называют первично—активным. Если же в качестве источника энергии
используется градиент концентрации ионов, то транспорт называют вторично—активным.
Тип транспорта (пассивный или активный) зависит от изменения свободной энергии
транспортируемых катионов.
Сейчас известны следующие механизмы прохождения ионов через
мембрану: 1 — растворение иона в липидной фазе мембраны, диффузия и последующий
переход из мембраны в раствор, 2 — движение по гидрофильным ионным каналам в
мембране, 3 — транспорт с участием переносчиков. В качестве переносчиков чаще
всего выступает внутриклеточный циклический аденозин—монофосфат — цАМФ, и
инозитолтрифосфат — ИФ3 (рис. 1.7).
В последнем случае возбуждающий или тормозный внешние сигналы
активируют мембранные рецепторы — Д. Эти рецепторы регулируют процесс
|
|
|
Рис. 1.7 Цепь реакций с участником внутриклеточного
посредника цАМФ Rs — возбуждающий рецептор, Ri — тормозный рецептор, Gs — возбуждающий G—белок, G1 — тормозный G—белок, ГТФ —
гуанозин—трифосфат, АТФ — аденозитрифосфат, ГДФ — гуанозиндифосфат, АУ —
аденилатциклаза, АМФ — аденозинмонофосфат, цАМФ — циклический
аденозинмонофосфат, Фн — фосфат. На схеме показаны также фармакологические
препараты и токсины, которые запускают (+) или ингибируют (—) некоторые
реакции. |
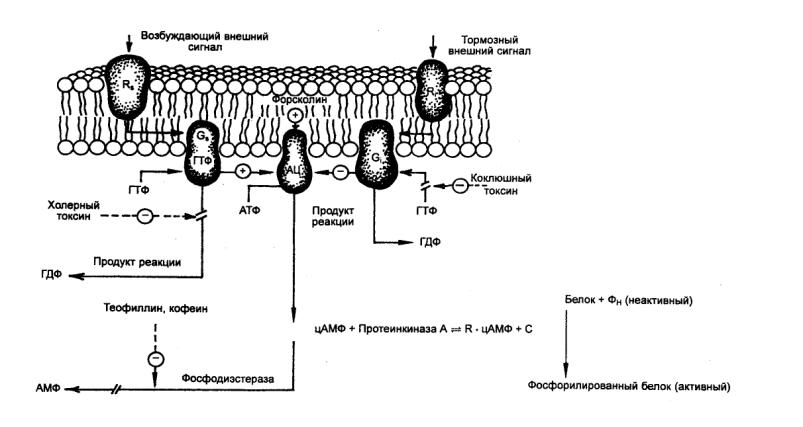
связывания G—белков с внутриклеточным ГТФ (гуанозинтрифосфатом),
стимулируя или подавляя тем самым внутриклеточную аденилатциклазу (АЦ).
Усиливающий фермент АЦ превращает АТФ в цАМФ, который затем при участии
фосфодиэстеразы расщепляется до АМФ. Свободный цАМФ диффундирует в клетку и
активирует аденилаткиназу (А—киназу), высвобождая ее каталитическую субъединицу
С, которая катализирует фосфорилирование внутриклеточных белков, т. е. формирует
конечный эффект внутриклеточного стимула. Механизмы эти в равной мере
характерны для естественных биологических и для искусственных липидных мембран.
Мембрана состоит из липидов, белков и мукополисахаридов.
Бимолекулярный слой липидов является матриксом мембраны. Белки,
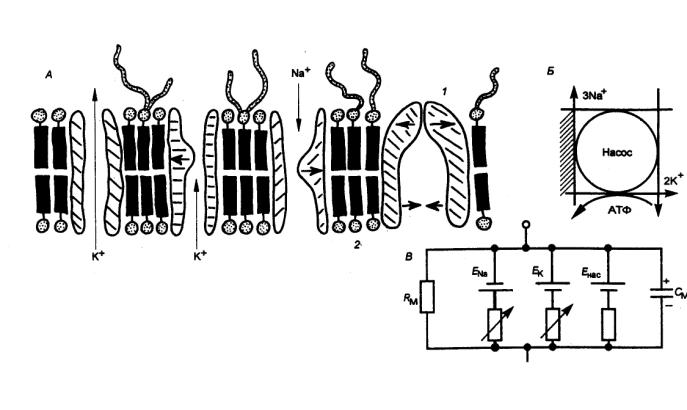
вкрапленные в липидный матрикс, образуют каналы для воды и ионов, формируют
ионные насосы и т. п. (рис. 1.8). Мукополисахариды, располагаясь в виде
«деревьев» на поверхности мембраны, осуществляют рецепторные функции. Мембрана
постоянно обновляется. При этом ее качества могут несколько меняться в
зависимости от изменения программы соответствующих процессов синтеза.
Клеточная мембрана обладает значительными электрическим
сопротивлением и емкостью. У аксона кальмара, например, удельное сопротивление
мембраны (Rм) (здесь при расчете удельного сопротивления (Rм) значение в омах
умножают (а не делят) на площадь мембраны, так как для пересекающего мембрану
тока с ростом этой площади сопротивление уменьшается (а не растет)) составляет
в покое 1000 Ом х см2, а емкость (См) равна примерно 1 мкф/см2.
Емкость мембраны, которая создается в основном ее липидным матриксом, довольно
постоянна. Сопротивление мембраны проходящему току сильно зависит от состояния
ее ионных каналов.
Мембрана легко проницаема для жирорастворимых веществ,
молекулы которых проникают через липидный матрикс. Крупные водорастворимые
молекулы, в том числе анионы органических кислот, по существу, совсем не
проходят через мембрану (могут покидать клетку лишь путем экзоцитоза). В то же
время в мембране нервного волокна существуют каналы, проницаемые для воды, для
малых молекул водорастворимых веществ и для малых ионов.
|
|
|
Рис. 1.8
Строение плазматической мембраны и ее механизмы, ответственные за мембранные
потенциалы покоя и действия (упрощенная схема). А — участок мембраны (продольный срез); Б — условное изображение активного
переноса ионов насосом за счет энергии АТФ; В — эквивалентная электрическая
схема мембраны: I — насос, 2 — липидный матрикс; заштрихованы
белковые макромолекулы, формирующие безворотный ионный какал, специальные
натриевые и калиевые каналы с воротными механизмами и насос; горизонтальными
стрелками показаны открытие (и закрытие) воротных устройств; вертикальными —
направление движения ионов. Rм— сопротивление мембраны, ЕNа — заряд, обусловленный ионами Na, Ек — заряд, обусловленный ионами
К, Енас — емкость насоса. См — емкость мембраны. |
|
|
|
Рис. 1.9 Основные состояния
натриевых каналов А — в покое; В —
при деполяризации; В — при продолжительной деполяризации. |
Ионные каналы. Эти мембранные структуры являются
интегральными белками (гликопротеинами), пронизывающими липидный бислой и
способными при адекватных внешних воздействиях (изменение потенциала на
мембране, действие гормона или медиатора) избирательно менять проницаемость
мембраны для определенных ионов (Na+ K+, Са2+, Сl—). Например, в покое (мембрана не деполяризована) натриевый
канал не пропускает ионы Na+, поскольку закрыты м—ворота (рис. 1.9). При
деполяризации м—ворота открываются и канал активируется, т. е. начинает
пропускать ионы Na+. Из—за этого м—ворота называют также
активационными. В открытом состоянии проводимость канала в значительной степени
определяется его селективным фильтром, который не пропускает анионы и гораздо
более свободно пропускает Na+, чем K+ или Са2+.
При более длительной деполяризации закрываются h—ворота (инактивационные),
расположенные у внутренней стороны мембраны, и канал инактивируется.
Реполяризация до уровня потенциала покоя вновь приводит к открытию h—ворот и
закрытию м—ворот. В этом состоянии канал можно вновь активировать
дёполяризующим стимулом.
В основе многих физиологических процессов (передача
электрических и химических сигналов, мышечное сокращение, секреторный процесс и
т. д.) лежит прежде всего работа ионных каналов. Их характеристики могут
изменять некоторые фармакологические препараты и яды.
Каналам биомембран свойственна характерная избирательность
для ионов (селективность), а также способность открываться и закрываться
при различных воздействиях на мембрану (воротная функция). Переходы
каналов из открытого состояния в закрытое (воротный механизм) могут быть
обусловлены изменениями мембранного потенциала, взаимодействием с определенными
химическими веществами, специфическим фосфорилированием каналов. Воротный
механизм каналов управляется сенсором внешнего стимула. В зависимости от
локализации сенсора каналы разделяются на две группы.
К первой группе относятся каналы, имеющие собственный
сенсор (входящий в состав макромолекулы) внешнего сигнала (рис. 1.10).
Внешний стимул влияет непосредственно на макромолекулу канала. Эта группа
включает два больших семейства ионных каналов: потенциал— и лигандозависимые.
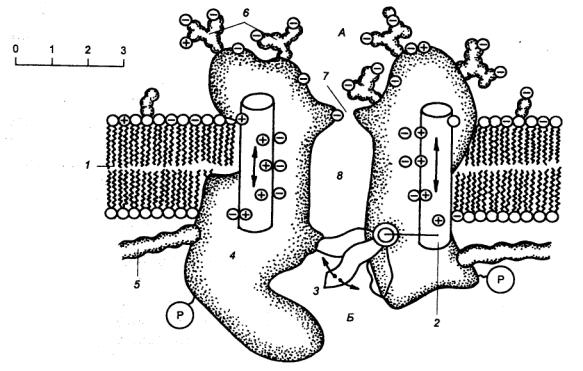
Потенциалозависимые каналы (Na+, K+, Са2+, Сl——каналы) открываются и закрываются при изменении
электрического потенциала на мембране (рис. 1.11).
|
|
|
Рис. 1.10 Различные способы, управления
ионными каналами А — ионный канал, имеющий собственный сенсор внешних
сигналов; Б — ионный канал, имеющий
внешний сенсор и опосредованно управляемый химическим сигналом. 1 — первичный посредник (сигнал), 2 — рецептор первичного посредника,
3 — ворота, 4 —
внутриклеточный вторичный посредник, 5 — рецептор вторичного посредника; а — наружный раствор, б — цитоплазма. |
|
|
|
Рис. 1.11 Строение потенциалозависимого ионного канала 1 — липидный бислой, 2
— сенсор напряжения, 3— ворота, 4
— белковая макромолекула, 5 — якорный белок, 6—углеводные цепи, 7 — селективный фильтр, 8 — водная пора, Р — участок фосфорилирования
канала, А — наружный раствор,
Б — цитоплазма. Размеры
указаны в нанометрах. |
Лигандозависимые ионные каналы
обеспечивают быструю передачу сигналов между клетками, например, в химических
синапсах. Эти каналы открываются при связывании с рецептором ряда биологически
активных веществ, таких как ацетилхолин, глутамат, γ—аминомасляная
кислота.
В каналах второй группы сенсор внешнего сигнала
(рецептор первичного посредника) пространственно разобщен с каналом.
Взаимодействие сенсора и канала осуществляется с помощью растворимых
внутриклеточных вторичных посредников. Это рецепторзависимые ионные каналы,
каналы, опосредованно управляемые химическими сигналами. К ним относятся также
каналы, управляемые G—белками, которые активируются при связывании лиганда с
рецептором.
В покое практически все натриевые каналы мембраны аксона
закрыты, а большое число калиевых — открыто. Определенное состояние ионных
каналов мембраны (например, закрытое у натриевых, открытое у значительной части
калиевых) очень важно для генерации МПП нервной клеткой. Кроме того, в
мембране находятся неспецифические каналы для ионной утечки, каждый из
которых проницаем для K+, Nа+ и Сl— (больше всего для К+). Эти каналы не имеют воротных
механизмов, всегда открыты и почти не меняют своего состояния при электрических
воздействиях на мембрану.
Ионный насос. Важным условием для формирования МПП является отличие
ионного состава аксоплазмы от ионного состава внешней среды.
В табл. 1.1 сопоставлен ионный состав аксоплазмы гигантского
аксона и крови кальмара. Различия в этих составах постоянны и в основном
сводятся к тому, что в аксоплазме по сравнению с кровью меньше ионов Na+, больше К+ и несравненно
больше органических анионов. Последние не могут проникнуть через неповрежденную
мембрану наружу. Что касается катионных различий, то они являются результатом
работы так называемого натрий—калиевого насоса мембраны, непрерывно
откачивающего Na+ из клетки в обмен на К+ (см. рис. 1.12).
Та бл и
ц а 1.1
Ионный
состав аксоплазмы и внешней среды гигантского аксона кальмара, ммоль/кг воды
|
Вещества |
Аксоплазма |
Кровь |
Морская
вода |
|
К+ |
400 |
20 |
10 |
|
Na+ |
50 |
440 |
460 |
|
Сl— |
40—150 |
560 |
540 |
|
Са2+ |
0—4 |
10 |
10 |
|
Mg2+ |
10 |
54 |
53 |
|
Изотионовая
кислота |
250 |
— |
— |
|
Аспарагиновая
кислота |
75 |
— |
— |
|
Глутаминовая
кислота |
12 |
— |
— |
|
Янтарная
и фумаровая кислоты |
17 |
— |
— |
|
АТФ |
0,7—1,7 |
|
|
|
Аргининфосфат |
1,3—5,7 |
|
|
|
H2O |
865 |
870 |
966 |
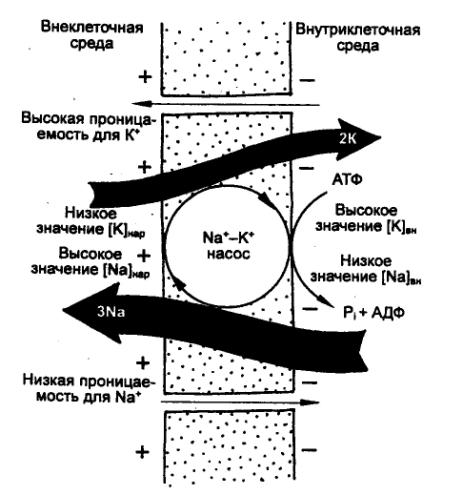
Поскольку этот насос работает таким образом, что удаляя из
клетки три иона Na+, он вводит в нее два иона К+, т. е. в
конечном счете удаляя из клетки положительные заряды, он может вносить прямой вклад
в создание потенциала покоя. Косвенная роль натрий—калиевого насоса связана с
тем, что он поддерживает высокую концентрацию калия во внутриклеточной среде.
Основным же фактором, ответственным за создание потенциала покоя, служит
высокая проницаемость мембраны для калия (по сравнению с другими ионами),
благодаря которой калий диффундирует из клетки до тех пор, пока его выходу не
будет препятствовать накопление в клетке отрицательных зарядов.
Перенос ионов против градиентов их концентраций называют активным
ионным транспортом в отличие от пассивного транспорта — утечки
ионов.
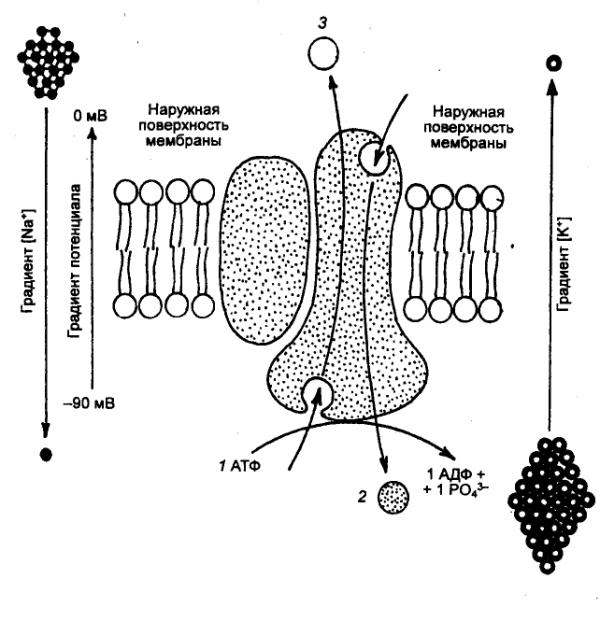
Натрий—калиевый насос работает, потребляя энергию АТФ, его
основным компонентом является фермент — мембранная Na, К—АТФаза. АТФаза погружена
в липидный бислой плазматической мембраны (рис. 1.13). В ходе работы одна
молекула АТФ расщепляется на АДФ и фосфат. В норме АТФ поступает к насосу из
аксональных митохондрий. Поэтому в лишенном аксоплазмы перфузируемом аксоне
насос работает только при добавлении к перфузату АТФ. Для работы насоса, кроме
того, требуется наличие в среде ионов K+, а внутри волокна —
ионов Na+. Макромолекулярный механизм насоса работает лишь в случае присоединения
к этой системе снаружи ионов К+, а изнутри клетки — ионов Na+ (рис. 1.8, 1.12, 1.13).
Утечка ионов. Поляризация мембраны при открытых калиевых каналах, т. е. при
высокой калиевой проницаемости (Рk) мембраны и при наличии большого
трансмембранного градиента концентраций K+ ([К+вн)
>> [К+нар), объясняется прежде всего хотя и очень небольшой,
но существующей утечкой внутриклеточного К+ в среду.
Утечка К+ создает разность электрических
потенциалов между средой и аксоплазмой в условиях, когда вход Na+ в
клетку или выход из нее органических анионов (что могло бы компенсировать
нарушения электронейтральности
|
|
|
Рис. 1.12 Прямое и косвенное участие натриевого
насоса в создании потенциала покоя |
|
|
|
Рис. 1.13 Участие АТФазы в работе натрий—калиевого насоса
(объяснение в тексте) |
от потери К+) исключены свойствами
покоящейся мембраны. В этой ситуации на мембране создается двойной
электрический слой (снаружи — катионы, главным образом Na+,
внутри — анионы, главным образом органических кислот), препятствующий
дальнейшему выходу К+.
Рассмотрим некоторые подробности. Перемещение К+
из клетки наружу осуществляется концентрационным градиентом этого иона,
совершающим «осмотическую» работу (аосм):
Аосм= RTln(K+)нар/(К+)вн
где R — универсальная газовая постоянная, т. е. кинетическая
энергия 1 моля ионов при температуре Т = 1К.
В силу возникающего мембранного
потенциала ионы К+ частично возвращаются в клетку, при этом
совершается электрическая работа Аэл = QE = nFE, где Q — количество электричества, п — валентность, F — число Фарадея (заряд 1 моля одновалентных ионов), Е
— потенциал. Если выход ионов К+ из клетки преобладает над их
возвращением, то постепенно растет Аэл и несколько падает Аосм. В
итоге на мембране достигается Е, при котором Аэл = Аосм для
иона К+ т. е. калиевый равновесный потенциал, обозначаемый Ек.
Из сказанного следует, что
Ек=RT/F х ln(К+)нар/(К+)вн
или упрощенно (при t = 20 °С)
Ек = 58lg(К+)нар/(К+)вн
(формула Нернста).
Разность между текущим значением мембранного потенциала,
(МП) (МП обозначает любое значение потенциала мембраны, наблюдаемое в состоянии
покоя (МПП) и в состоянии возбуждения) и Ек называют электрохимическим
градиентом для К+. Электрохимический градиент — причина
пассивного движения К+ через мембрану в естественных условиях.
Справедливость этих представлений доказывается обратной
зависимостью МП нервного волокна от ln (К+)нар (рис.
1.14). По тому же принципу может быть рассчитан электрохимический градиент для
Na+ (ENa), Cl— (ECl) или Ca2+ (ECa).
Мембранный потенциал покоя гигантского аксона кальмара (—70
мВ) близок к его Еk (—75 мВ), но не точно равен ему, так как
МПП здесь формируется не только утечкой ионов K+, но и
утечкой ионов Na+ и Сl—. При этом поступление Сl— в аксон (ECl = —70 мВ) повышает (повышением МПП
условно называют увеличение электроотрицательности внутренней поверхности
мембраны), а Na+ — понижает МПП (ЕNa= +55 мВ).
Итоговая величина Е, создаваемого утечкой ионов К+,
Na+ и Сl—, может быть достаточно точно рассчитана по формуле Гольдмана
E = RT/F х ln PK(K+)НАР + PNa(Na+)НАР + PCl(Cl—)ВН / PK(K+)ВН + PNa(Na+)ВН + PCl(Cl—)НАР
где Р — проницаемость
мембраны для соответствующих ионов. Ее часто выражают в относительных
величинах, принимая Рk за единицу. Для мембраны аксона кальмара в
покое отношение Рк; PNa:pci = 1 : 0,04 : 0,45.
Утечка ионов, прежде всего ионов К+, формирует
так называемый концентрационный потенциал (Еконц )— основную часть
реального МПП.
Прямой электрогенный эффект насоса. В перфузируемом чистым солевым
раствором гигантском аксоне кальмара утечка ионов — это, по существу,
единственный механизм формирования МПП, но в естественных условиях в
образовании МПП участвует еще один добавочный механизм — прямой
электрогенньй эффект натрий—калиевого насоса (рис. 1.15).
|
|
|
Рис. 1.14 Зависимость мембранного потенциала (МП) нервного волокна
каракатицы от наружной концентрации К+(1) и величина МП, рассчитанная по
уравнению Нернста для калиевого электрода (2) |
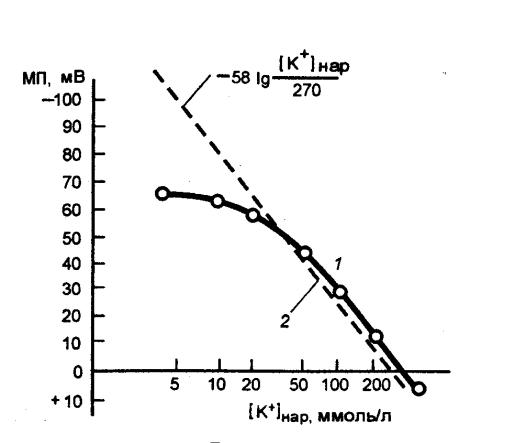
Прямой электрогенный эффект насоса (который следует отличать
от неэлектрогенного, т. е. от участия насоса в создании концентрационных
градиентов) состоит в поляризации мембраны, возникающей при неравенстве числа (q) ионов Na+ и К+, которые
переносятся в каждом цикле работы насоса.
Только если эти числа равны, насос работает
электронейтрально. Если qNа > qK, то его работа увеличивает Ем
(так происходит в нервных и мышечных клетках), если же qNа << qK то Ем уменьшается, что,
по—видимому, происходит в шванновских клетках. В нервных волокнах и клетках qNа / qK = 3/2.
Прямой электрогенный эффект насоса (Енас)
зависит не только от скорости переноса заряда насосом, но и от скорости
утечки последних в противоположном направлении. В условиях стационарности
электрический ток насоса (Iнас) равен току утечки (Iу), создаваемому за счет Енас.
Кроме того, ток утечки зависит от электрического сопротивления мембраны. Таким
образом, Iy = Eнас/Rм, откуда Iнас = Eнас/Rм
и, соответственно, Енас = IнacRм. У гигантского аксона
кальмара
|
|
|
Рис. 1.15 Две гипотезы, о механизме работы
натрий—калиевого насоса мембраны. А — схема с перемещающимися
внутримембранными частицами; Б — схема с мембранной макромолекулой, ритмически
изменяющей свою конформацию: / — внутриклеточная среда, II — мембрана, III — внеклеточная среда; 1 — транспортируемое вещество, 2 — транспортирующие частицы, 3 —
макромолекула, ритмически меняющая свою конформацию (за счет энергии АТФ): а — конформация для отдачи вещества
во внешнюю среду, б — конформация для приема вещества из клетки; стрелками показано направление движения частиц. |
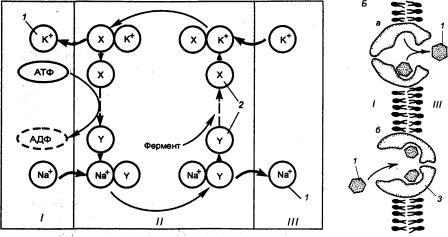
rm относительно мало, и поэтому Eнас тоже невелико (~1 мВ). В некоторых
нервных клетках моллюсков, где Rм велико (мегаомы), Енас достигает десятка
милливольт.
Электрогенный эффект насоса может быть быстро устранен или
блокадой мембранной Na, К—АТФазы с помощью сердечных гликозидов (оубаина и др.),
или снижением температуры до 5 оС, или нарушением выработки АТФ (при
действии динитрофенола и цианидов, гипоксии). Концентрационный потенциал при
этом не исчезает, а снижается достаточно медленно по мере потери ионных
градиентов на мембране. Реальный МПП складывается из Еконц и
Енас.
В миелинизированных нервных волокнах у позвоночных МПП
перехвата Ранвье составляет около —70 мВ. Его концентрационный компонент имеет
в основном калиевую природу, как и в аксоне кальмара. Электрогенный эффект
ионного насоса в нормальной среде здесь близок к нулю и только при повышенной
концентрации K+ снаружи этот эффект усиливается настолько,
что может достигнуть 3—4 мВ. Последнее происходит за счет усиления насосного
тока.
Функция мембранного потенциала покоя. В самой мембране МПП проявляется как
электрическое поле значительной напряженности (105 В/см). Это поле
воздействует на макромолекулы мембраны и придает их заряженным группам
определенную пространственную ориентацию.
Особенно важно то, что электрическое поле МПП обеспечивает закрытое
состояние так называемых активационных ворот натриевых каналов и открытое
состояние их инактивационных ворот (см. разд. 1.1.3). Этим обеспечивается
состояние покоя и готовности к возбуждению.
Даже относительно небольшой сброс мембранного потенциала
(частичная деполяризация) открывает активационные ворота этих каналов и выводит
клетку из состояния покоя, дает начало возбуждению. При возбуждении
используется электрическая энергия, накопленная в МПП.
1.1.3. Потенциалы и трансмембранные токи при возбуждении
Потенциал действия. Потенциал действия (ПД), или потенциал возбуждения
нервных клеток (волокон), возникает в ответ на достаточное по силе раздражение.
ПД — очень быстрый, кратковременный электрический процесс, поэтому для его
регистрации необходим катодный осциллограф с широкополосным усилителем.
Классическое исследование параметров и механизма ПД
проделано на гигантском аксоне кальмара с внутриклеточным раздражением и
отведением внутриклеточного потенциала (рис. 1.16). В это нервное волокно
(диаметром 0,5—1 мм) вводили на всю его длину два тончайших проволочных
электрода. Один из них был раздражающим: через него в волокно подавали толчки
тока того или иного направления, другой регистрировал электрический потенциал.
При подаче короткого и слабого толчка выходящего тока (его направление
определяют для положительных зарядов) внутриклеточный электрод регистрировал
кратковременное падение МП, по форме и силе соответствующее толчку тока, но со
сглаженными передний и задним фронтами, что определяется емкостью мембраны. Это
так называемый электротонический потенциал (ЭП).
При подаче несколько более сильного толчка выходящего тока
возникает эффект подпорогового раздражения: к электротоническому
потенциалу присоединяется дополнительная деполяризация, называемая подпороговым,
или локальным, ответом (ЛО).
|
|
|
Рис. 1.16 Основные электрофизиологические феномены в
нервном волокне Аэт —
анаэлектротон, КУД — критический уровень деполяризации, Кэт — катэлектротон,
ЛО — локальный (подпороговый активный) ответ, МПП — мембранный потенциал
покоя, ПД — потенциал действия, СП (отр и пол) — следовые потенциалы
отрицательный и положительный (временные соотношения пика ПД и СП не
выдержаны; отрицательный СП и особенно положительный СП значительно
длительнее). |
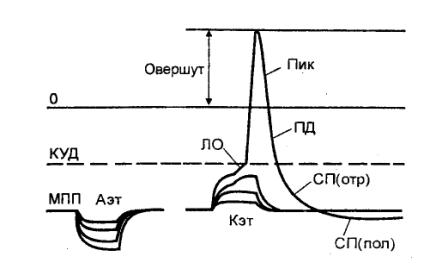
Локальным он называется потому, что и
в экспериментальных, и в естественных уровнях этот потенциал не
распространяется далеко. При
усилении стимула и достижении порога раздражения, т. е. критического уровня
деполяризации (КУД), возникает потенциал действия (рис. 1.16). При
толчке входящего тока любой величины образуется только электротонический
потенциал.
В потенциале действия различают пик (спайк) и следовые
потенциалы.
Пик ПД представляет собой кратковременную инверсию
внутриклеточного потенциала. Он имеет очень быструю восходящую фазу и несколько
более медленный спад. Общая длительность пика в данном объекте составляет около
3 мс; амплитуда пика 110 мВ, т. е. превышает МПП (70 мВ) на 40 мВ. Эту разницу
называют овершутом (от англ. overshoot — перелет). Вслед за пиком
ПД регистрируются значительно более слабые и длительные отрицательный и далее
положительный следовой потенциалы.
Потенциал действия имеет стандартные амплитуду и временнаые
параметры, не зависящие от силы. стимула, вызвавшего данный ПД (правило «все
или ничего»).
При раздражении гигантского аксона выходящим током через
проволочный электрод, введенный на всю длину волокна, все точки этого нервного
проводника раздражаются практически равномерно, так что в них одновременно
возникает и развивается ПД. Такой ПД, по существу, не распространяется и
называется мембранным. В естественных условиях ПД возникает локально, а
затем распространяется (проводится) вдоль волокна. Это распространяющийся
ПД. Мембранный ПД более удобен для анализа. (В миелинизированных волокнах мембранный
ПД получают при работе на изолированном одиночном перехвате Ранвье.)
Потенциал действия — это электрический феномен, возникающий
на плазматической мембране. Практически нормальный ПД возникает и в
перфузируемом гигантском аксоне, лишенном аксоплазмы, при электрической
стимуляции его мембраны.
Механизм потенциала действия. Причиной развития ПД является
вызываемое критической деполяризацией мембраны открытие ее натриевых и
калиевых каналов. Каналы, открываемые электрическим стимулом, называют потенциалозависимыми.
Открытие потенциалозависимых каналов приводит к пассивному
движению соответствующих ионов по их электрохимическим градиентам.
Вход ионов Na+ в волокно обеспечивает восходящую
фазу пика ПД, т. е. деполяризацию и инверсию потенциала на мембране, а
несколько запаздывающий выход ионов K+ участвует в создании
нисходящей фазы пика — реполяризации.
При развитии пика ПД отношение РK : РNа :pci становится 1 : 20 : 0,45 (в покое
оно составляет 1 : 0,04 : 0,45). Связь развития пика ПД с током Na+
доказывается прямой зависимостью амплитуды ПД от электрохимического
градиента Na+ на мембране и достоверным переходом меченого 24Na из среды в волокно при его
возбуждении, причем в количестве, пропорциональном числу ПД. Связь
нисходящей фазы ПД с током К+ доказывается зависимостью хода
этой фазы от электрохимического градиента К+ на мембране.
Подробный анализ изменений
мембранной проницаемости для ионов Na+ и К+ основанный на измерениях
токов этих ионов, стал возможным благодаря использованию методики фиксации
(кламп) (от англ. clump — связка, комок) электрического потенциала
мембраны. В обычных условиях мембранные токи (при данных концентрационных
градиентах) зависят и от ионной проницаемости (РNа,K), и от
мембранного потенциала (МП). Мембранные токи могут точно характеризовать
изменения РNа, к только при постоянном МП.
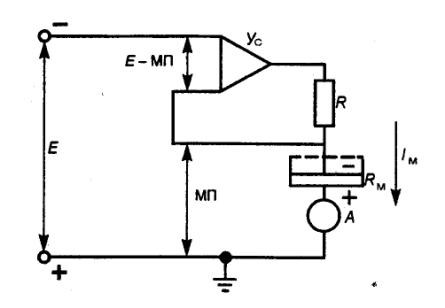
Для фиксации мембранного потенциала
мембрана гигантского волокна (или какой—либо иной клетки) с помощью
внутриклеточного и наружного электродов соединяется со специальной электронной
схемой (рис. 1.17). Основной частью этой схемы является дифференциальный
усилитель, сравнивающий МП с задаваемым от постороннего источника потенциалом Е.
Ток I на выходе усилителя определяется по направлению и значению
разностью (Е — МП), подаваемой на вход усилителя. Этот ток протекает
через мембрану и создает на ней дополнительный скачок потенциала, который
уменьшает абсолютную величину разности (Е — МП). При большом
коэффициенте усиления дифференциального усилителя и малой величине R в цепи, подводящей ток,
компенсирующий скачок потенциала на мембране может быть весьма приближен по
величине к (Е — МП), так что в итоге МП может стать приблизительно
равным Е.
В этой ситуации при достаточном
быстродействии системы (при ее постоянной времени τ < 20 мкс) любое,
даже слабое случайное смещение МП немедленно компенсируется. Таким образом, МП
фиксируется на величине Е и вместе с тем управляется путем изменения
этой величины Е. Методика фиксации потенциала на мембране исключает
любые смещения МП, в том числе потенциалы действия. Но она позволяет
регистрировать и исследовать трансмембранные токи, возникающие при
искусственном изменении МП. При фиксированной величине МП эти токи
пропорциональны изменениям РNa и РK.
Если фиксированный МП равен
потенциалу покоя, то трансмембранного тока практически нет. Если МП
скачкообразно повышают, то возникает только направленный внутрь очень краткий
ток дозарядки мембранной емкости и за ним постоянный ток утечки. Но если МП
скачком снижают, то вслед за током разряда мембранной емкости на фоне тока
утечки, направленного наружу, дополнительно возникает краткий, быстрый ток
внутрь и за ним более длительный медленный ток наружу. Последние два
тока — это ионные токи, текущие через натриевые и калиевые каналы, которые
открываются с помощью деполяризации.
При устранении натриевого градиента
на мембране путем замены части Nа+ на холин или доведения МП до
величины Е = ЕNa картина преобразуется:
исчезает быстрый, направленный
внутрь ток и выявляется в неосложненном виде медленный ток, направленный
наружу. Того же можно добиться специфической блокадой натриевых каналов,
применив тетродотоксин (ТТХ).
Таким образом, быстрый
направленный внутрь ток — это натриевый ток. Картина его развития
может быть получена путем геометрического
|
|
|
Рис. 1.17 Методика
фиксации мембранного потенциала (МП) и регистрации трансмембранных токов (Iм) Ус —
усилитель, реагирующий выходным током на разность между задаваемым «извне»
потенциалом Е и МП. В силу конструкции
системы ток I этого
усилителя, проходя через сопротивление мембраны (Rм) изменяет МП так, что достигается равенство между МП и Е. При достаточном коэффициенте
усиления усилителя и быстродействии системы МП практически фиксируется на
уровне Е. При снижении Е и вслед за ним МП до КУД или более в мембране нервного волокна (кальмара)
открываются потенциалозависимые натриевые и калиевые каналы, что порождает
трансмембранные токи, которые и регистрируются на фоне поддерживаемого
сниженного МП. |
вычитания медленного ионного тока из
суммарного (см. рис. 1.17). Натриевый ток пропорционален натриевому
электрохимическому градиенту и натриевой проницаемости (PNa). Медленный (задержанный) ионный
ток — это калиевый ток. Его значение пропорционально калиевому
электрохимическому градиенту и рк. Установлено,
что этот ток устраняется блокадой калиевых каналов тетраэтиламмонием
(ТЭА), прилагаемым снаружи.
Быстрый входящий ina
и медленный выходящий IK возникают практически одновременно,
но INa быстрее развивается, достигая своего
«потолка». Если МП возвращается к величине, характерной для покоя, то INa исчезает примерно в 10 раз быстрее,
чем IK т. е. в массе натриевые каналы мембраны и активируются
(деполяризацией), и деактивируются (реполяризацией) быстрее, чем калиевые.
Активация, деактивация и инактивация ионных каналов. Активация каналов определяется
открытием их активационных ворот (соответствующим изменением конформации неких
макромолекул), а деактивация — закрытием этих же ворот.
Возвращаясь к картине развития INa и IK длительной
деполяризации (см. рис. 1.17) в условиях клампа, необходимо обратить внимание
на то, что INa уже через 5 мс исчезает, несмотря на деполяризованное
состояние мембраны (Ik при этом сохраняется).
Этот феномен называют инактивацией натриевых каналов.
Его связывают с закрытием специальных инактивационных ворот в натриевых
каналах. То, что здесь действительно существует специальный макромолекулярный
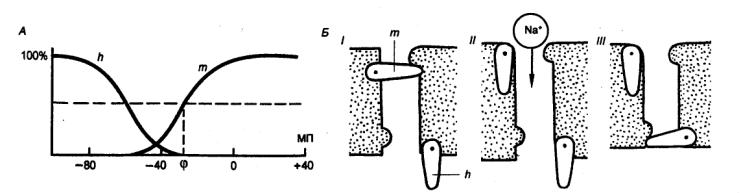
механизм, доказано избирательным нарушением инактивации PNa под влиянием фермента проназы. Схема
срабатывания активационных ворот натриевых каналов, а также их инактивационных ворот при разных
МП приведена на рис. 1.18.
Инактивация натриевых каналов, т. е. закрытие их
инактивационных ворот, развивается вследствие деполяризации, как и активация,
но позже, что
|
|
|
Рис.
1.18 Работа ворот
потенциалозависимых натриевых каналов мембраны А — зависимость процента открытых h— и т— ворот от мембранного потенциала
(МП); Б — положение т— и h—ворот при покое (J), развитии пика ПД (II) и рефрактерности (III): т — активационные ворота, h — инактивациониые ворота, φ
— потенциал, при котором открыты м—ворота у 50% каналов. |
и делает возможным развитие INa (a значит, и ПД в естественных
условиях). Инактивация РNa — очень важный механизм, который
способствует прекращению пика ПД, развитию временной невозбудимости — рефрактерности.
Инактивация Na—каналов устраняется после реполяризации мембраны.
Ионные токи при развитии потенциала
действия. Ионные
токи формируют фазы пика ПД. Эти токи в общем сходны с токами, получаемыми при
критической деполяризации в методике клампа, но развиваются и прекращаются они
гораздо быстрее.
В процессе развития ПД действуют
многие факторы, связанные прямыми и обратными связями. Например, на
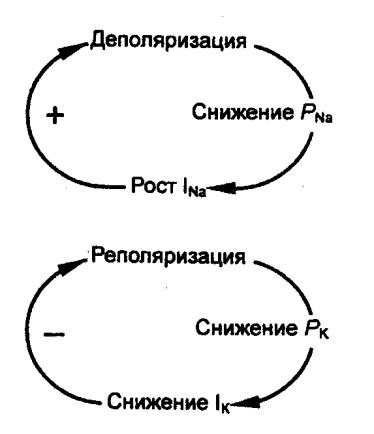
восходящей фазе ПД действует система факторов с положительной обратной
связью (отмечена знаком «+»).
Здесь деполяризация увеличивает РNа,
а последняя порождает INa, усиливающий деполяризацию (пока и
поскольку INa больше Ik
+ Iy). В силу этих отношений INa и восходящая фаза ПД развиваются с
ускорением, а амплитуда ПД быстро достигает некоторого максимума, более
или менее приближенного к ЕNa.
На спаде ПД при реполяризации
для INa действует та же
система факторов, но с обратными знаками эффектов, а для калиевого тока — система факторов с отрицательной
обратной связью (отмечена знаком «—»).
В итоге спад IK несколько затягивается.
Если скрупулезно учесть все эти
факторы и их взаимодействие, то можно из значения токов, получаемых при
фиксации мембранного потенциала на разных уровнях, рассчитать форму нормального
ПД. Показано совпадение расчетных параметров ПД и показателей ПД,
регистрируемых в опыте.
Взаимодействие некоторых из этих
факторов можно наглядно представить эквивалентной схемой (см. рис. 1.8, В).
Отрицательный следовой потенциал
связан с остаточным INa и с накоплением К+ в межклеточных щелях;
положительный следовой потенциал — с остаточным IK но главным
образом с электрогенной работой натрий—калиевого насоса мембраны,
активизируемого накоплением Na+ под мембраной (из—за INa ПД), а К+ — в
межклеточных щелях. В некоторых нервных клетках сразу вслед за пиком
развивается довольно значительный краткий положительный следовой потенциал. Его
называют андершут (от
англ. undershoot — недолет), он создается остаточным IK.
Расход ионов на пик одного
проводящегося ПД в гигантском аксоне кальмара очень мал. Например, расход
внутриаксонального К+ при этом приблизительно равен одной
миллионной доле внутреннего калиевого запаса.
Пик ПД — весьма экономичный сигнал,
практически не нарушающий ионных градиентов на мембране, энергией которых он
питается.
Ионные градиенты на мембране — это
«пружина», энергии которой может хватить на 5—105 ПД без подзарядки.
Но для длительной работы волокна ионные градиенты нужно восстанавливать, что и
обеспечивает работа натрий—калиевого насоса мембраны.
Рассмотрим подпороговый локальный
ответ (ЛО) в нервном волокне. Этот ответ обладает в основном тем же
механизмом, что и ПД. Его восходящая фаза определяется входящим INa, а нисходящая — выходящим IK.
Однако амплитуда ЛО (и его натриевый ток) пропорциональна силе подпорогового
раздражения, а не стандартна, как у ПД, т. е. не подчиняется правилу «все или
ничего».
Особенности потенциалов действия в соме нейрона. Необходимо остановиться на
некоторых особенностях потенциалов действия в телах нейронов, подробно
исследованных у моллюсков. Тела гигантских нейронов брюхоногих моллюсков —
крупные образования, не имеющие на себе синапсов (синапсы у них находятся на
так называемом центральном отростке). Большие размеры и однородность
поверхности этих нейронов позволяют подробно исследовать электрические явления
на их мембране. На препарате соматической мембраны при электрическом
раздражении могут быть получены полноценные ПД. Удалось осуществить фиксацию
потенциала такой мембраны, изучить трансмембранные токи при ее активации.
Мембранный потенциал покоя сомы невелик (—40, —50 мВ);
потенциал действия имеет овершут и достигает 100 мВ и более, по форме он схож и
аксонным. Однако ионные механизмы ПД мембраны сомы нейрона моллюска имеют
существенные отличия от известных механизмов для нервных волокон. Главное
отличие состоит в том, что ПД здесь генерируется не только за счет входящего INa (как в аксоне), но и за счет
входящего ICa.
В соматической мембране нейронов находятся специальные кальциевые
каналы, открываемые деполяризацией.
Ток ионов Са2+ через них осуществляется по
электрохимическому градиенту. Эти каналы не блокируются ТТХ, но инактивируются
кобальтом, верапамилом и препаратом D—600.
Кальциевый ток развивается медленнее натриевого и гораздо
медленнее инактивируется (много секунд!). Значение этого тока даже при
сохранении высокого концентрационного градиента Са2+ чрезвычайно
зависит от внутренней концентрации Са2+. Этот ток полностью подавляется
(инактивируется), если (Са2+)вн =5,8 •10—8 моль/л. При
(Са2+)вн = 5,8 • 10—9 моль/л открываемая деполяризацией
кальциевая проводимость максимальна. При обычных для среды значениях (Са2+)нар
в этих условиях ЕCa приблизительно равен +130 или даже + 200
мВ.
Особенности ионных каналов соматической мембраны, вероятно,
имеют значение не только для электрогенеза. Можно думать, что они существенны и
для обеспечения интенсивно протекающих в соме метаболических реакций,
чувствительных к (Са2+)вн.
Шумы ионных каналов. Каждый из ионных каналов мембраны, обладающих воротными
механизмами, даже при постоянстве МП и химического состава среды не находится
постоянно в однотипном положении: он то открывается, то закрывается. Эти
переходы от закрытого состояния к открытому и обратно осуществляются по закону
случая.
Хаотическое открытие и закрытие каналов, порождающее
перемещение ионов, создает электрический шум. Для потенциалозависимых каналов
соответствующее электрическое поле является фактором, резко увеличивающим
вероятность их открытого состояния, что и создает эффект увеличения ионной
проницаемости.
При исследовании динамики каналов определенного вида изучают
электрический шум, создаваемый этими каналами в некотором небольшом участке
мембраны в условиях фиксации МП и химической блокады прочих каналов. Например,
в мембране гигантского аксона кальмара таким способом изучили шумы раздельно
натриевых и калиевых каналов. Анализ этих шумов позволил рассчитать плотность
расположения каналов в мембране и проводимость одиночного канала. Так, в
гигантском аксоне кальмара плотность натриевых каналов оказалась равной 300 на
1 мкм2, средняя электрическая проводимость—
|
|
|
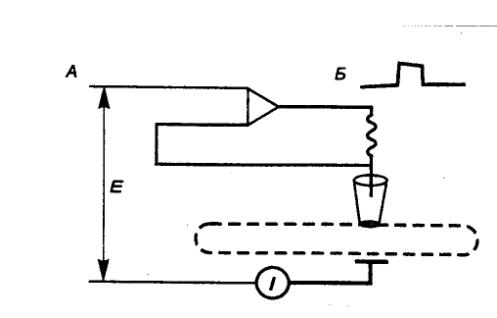
Рис. 1.19 Методика фиксации потенциала
в малом «лоскуте» мембраны (пэч—кламп) (от англ. patch — лоскут, клочок) Исследуемый
участок мембраны ограничен краями кончика прилипшей к мембране микропипетки
(микроэлектрода). Клетка(обозначена пунктиром) при этом может быть удалена (А). Если в исследуемом участке мембраны на короткое время
открывается один натриевый канал, то его
ток имеет
относительно простую прямоугольную форму (Б). |
4 пСм (пСм (р8) — пикосименс; сименс — величина,
обратная ому). В перехвате Ранвье амфибий плотность натриевых каналов 2000 на 1
мкм2, а средняя проводимость канала равна 8 пСм.
При фиксации потенциала в изолированном очень малом участке
мембраны удается регистрировать и токи одного канала (рис. 1.19). Так
были обнаружены, например, токи одиночного натриевого канала и токи одиночного
кальциевого канала. Эти токи имеют прямоугольную форму. Типичная плавная
форма ПД является результатом неодновременного открытия и закрытия массы
каналов.
1.1.4. Электрическое раздражение и
распространение возбуждения
Электрическое раздражение нервной
клетки — это такое
действие на нее электрического тока, которое вызывает ответ в форме потенциала
действия.
В основе электрического раздражения,
по современным представлениям, лежит срабатывание, т. е. открытие
потенциалозависимых активационных (т) ворот натриевых каналов. Эти
ворота, вероятно, формируются макромолекулярной структурой, имеющей полярные
группы и поэтому изменяющей свою конформацию под влиянием электрического поля.
Наличие таких поляризованных «воротных» молекул в мембране доказано
регистрацией воротных токов. Они очень слабы и кратки, но точно связаны с
условиями и моментами раздражения.
В натриевом канале существуют и инактивационные
(h) ворота. Из схемы положений т— и h—ворот при разных фиксированных МП
(см. рис. 1.18) следует, что m—ворота закрыты при нормальном МП и
гиперполяризации, но открываются при деполяризации; h—ворота открыты при
нормальном потенциале мембраны и гиперполяризации, но закрываются при
деполяризации. Выше было указано, что если бы в Na—каналах при деполяризации т—
и h—ворота срабатывали одновременно, то Na—каналы не могли бы открыться.
Так как скорость срабатывания
m—ворот выше, активация обгоняет инактивацию, что приводит к кратковременному
открытию натриевых каналов, т. е. к возбуждению, к развитию натриевого
тока, а в естественных условиях и ПД (или ЛО).
Причины существования критического
уровня деполяризации.
В условиях клампа процент каналов с открытыми m—воротами плавно растет с
деполяризацией. Как же при этом объясняют наличие резко обозначенного КУД и
порога для ПД? Рассмотрим некоторые подробности протекания ионных токов при
развитии электротонических потенциалов, ЛО и ПД и прежде всего токов, текущих
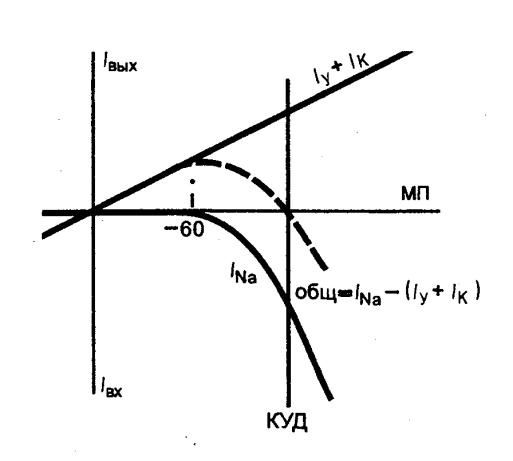
через мембрану нервного волокна в клампе при разных уровнях МП (рис. 1.20).
На уровне мембранного потенциала
покоя трансмембранных токов нет. При гиперполяризации возникает пассивный ток
утечки, направленный внутрь. При слабых деполяризациях регистрируется ток
утечки, идущий наружу. Если МП фиксировать на более низких уровнях (усилить
деполяризацию), то к току утечки добавляются INa,
направленный внутрь, и IK, идущий наружу. Возникает алгебраическое
сложение токов, в котором INа < IK + Iу
При еще более сильной деполяризации INa > IK + Iу
Суммарный трансмембранный ионный ток здесь имеет входящее направление.
Важно обратить внимание на точку на
оси потенциалов, где INа = IK + Iу. Что же
происходит в нервном волокне при указанных сдвигах МП в естественных условиях?
В области гиперполяризации и очень слабой
деполяризации, где действуют только токи утечки, развиваются неосложненные
электротонические потенциалы, пропорциональные стимулам. В области слабой
деполяризации, где INa < IK + Iу, к
катэлектротоническому (деполяризационному) потенциалу добавляется ЛО (см. рис.
1.16). Это связано с тем, что током Na+ частично компенсируется утечка
деполяризующего тока «мимо» мембранной емкости. Локальный ответ тем больше, чем
сильнее деполяризующий толчок, так как тем больше в нем доля INa. Амплитуда
ЛО варьирует от 0 до 20 мВ, суммарный ток при этом имеет выходящее направление
и не поддерживает, а ослабляет деполяризацию. Здесь нет саморазвития процесса
деполяризации.
При больших деполяризациях, когда INa > IK + Iу
суммарный трансмембранный ток имеет входящее направление; он усиливает
деполяризацию. При этом в силу уже рассмотренной положительной обратной связи INa
быстро растет, доводя МП до значения, более или менее близкого к ЕNa. Tак развивается ПД. Стандартность,
максимальность амплитуды ПД и ее независимость от силы стимула определяются
рассмотренными обстоятельствами.
Величина МП, при которой INa = IK + Iу,
соответствует КУД, а если считать от исходного значения МП, то порогу
раздражения. Для коротких стимулов в этой пограничной точке равновероятно, что
процесс изменения МП пойдет на убыль (ЛО) или произойдет лавинообразное
развитие деполяризации и инверсия знака потенциала мембраны (ПД). Так возникает
резкая граница между подпороговыми и сверхпороговыми деполяризациями.
|
|
|
Рис. 1.20 Соотношение значения различных трансмембранных
токов при кратких деполяризациях в методике фиксации потенциала Общий
ток имеет значение, равное разности входящего натриевого тока и выходящих
токов (калиевого и утечки). Критический уровень деполяризации (КУД) разделяет
области преобладания выходящих токов (подпороговую) и входящего тока
(сверхпороговую). |
Величина КУД зависит от
чувствительности m—ворот натриевых каналов к деполяризации (φ—потенциал на
рис. 1.18, А). Последняя тем больше, чем меньше концентрация Са2+ в
среде, и наоборот. Это объясняется влиянием Са2+ на состояние
поверхности мембраны. Но КУД зависит также и от концентрации натрия в среде [Na+]нар и от процента
исходно инактивированных Na—каналов. Чем больше этот процент, тем меньше INa, a значит, тем большая нужна
поляризация (КУД) для развития ПД. Наружный Са2+ препятствует
инактивации натриевых каналов. Таким образом, влияние Са2+ на КУД
сложно. Так как Ik
и Iy ослабляют действие INa, то для величины КУД имеет значение
также состояние специфических калиевых каналов и каналов тока утечки.
|
|
|
Рис. 1.21 Значение направления электрического тока, его
силы и крутизны для раздражения (т. е. вызова ПД) А — эффективное направление электрического тока при внутриклеточном
(а) в внеклеточном (б) раздражениях; Б
— порог раздражения, КУД и их
изменение при медленном нарастании силы тока. |
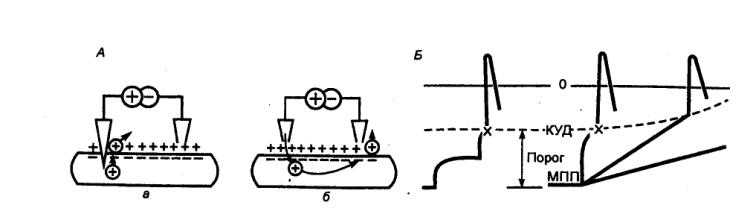
Законы электрического раздражения
нервных и мышечных элементов.
Полярный закон: раздражение обеспечивается только деполяризующим
внешним током, т. е. внешним током выходящего направления.
Именно такой ток деполяризует мембрану — снижает мембранный
потенциал (рис. 1.21). В случае приложения к объекту двух внешних
раздражающих электродов полярный закон гласит: при включении тока
раздражение возникает в области катода (здесь ток имеет выходящее направление).
Для внутриклеточного раздражения при включении тока необходимо, чтобы
внутриклеточный электрод имел положительный знак.
Для получения ответа в форме ПД необходимо, чтобы сила
раздражающего тока имела пороговое или сверхпороговое значение,
т. е. чтобы МП падал до КУД или еще более. Смысл этого «закона порога» уже
разъяснен выше; Необходимо лишь отметить, что пороговая деполяризация мембраны
(Uпор) равна МП — КУД, а пороговая сила тока (Iпор) составляет Uпор/Rвх, где Rвх — входное сопротивление объекта для электрического
тока. И если, к примеру, в некотором объекте МП = —70 мВ, КУД = —50 мВ, a Rвх = 20 МОм, то Uпор = 20 мВ, а Iпор=
20 мВ/20 МОм = 1 • 10—9 А.
В условиях, когда дёполяризующий ток дается не прямоугольным
толчком, а усиливается от нуля постепенно, ПД может вообще не возникнуть, если
при этом КУД (порог) смещается в позитивную сторону и изменяющийся в том же
направлении МП его не «догоняет». Отсюда вытекает закон крутизны
раздражения, констатирующий, что для раздражения дёполяризующий ток должен
нарастать достаточно круто.
Позитивное смещение КУД при длительной деполяризации
называют аккомодацией. Аккомодация объясняется частичной инактивацией
натриевых каналов и активацией калиевых. Аккомодационную способность измеряют
величиной критического наклона, или критического градиента,
линейно нарастающего стимула (т. е. деполяризации).
Не все нервные (и мышечные) элементы обладают одинаковой способностью
к аккомодации. Чувствительные нервные (и некоторые мышечные) волокна имеют
низкую аккомодационную способность. В ответ на очень медленно нарастающий и
даже на постоянный ток выходящего направления они отвечают постоянно
ритмическими повторными ПД. Каждый такой ПД возникает лишь после исчезновения
рефрактерности от предыдущего ПД (о понятии рефрактерности см. ниже).
Относительно высокая аккомодационная способность моторных
нервных волокон определяется главным образом мощной медленной активацией части
их калиевых каналов, порождаемой длительной деполяризацией мембраны.
|
|
|
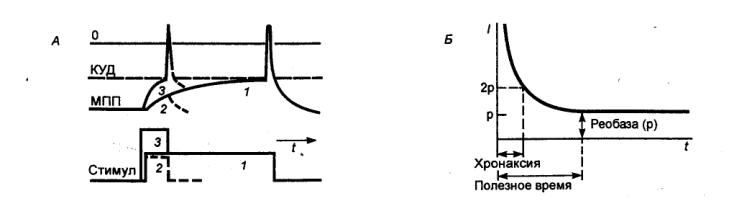
Рис. 1.22 Значение длительности толчка тока (стимула) для
его раздражающего действия А — рост порога при укорочении прямоугольного деполяризующего
толчка; Б — кривая зависимости порогового значения I от его длительности (t) и ее параметры: 1.2.3 — толчки
тока (стимулы) и вызываемые ими
катэлектротонические потенциалы. |
Если РК заранее
блокируют ТЭА, то аккомодационная способность моторных волокон ослабляется и
приближается к таковой у чувствительных волокон.
Пороговая сила деполяризующего тока (но не КУД!) в известной
мере зависит от длительности действия раздражающего тока. Эта
зависимость выражается кривой силы—длительности порогового раздражения (рис.
1.22).
Кривая силы—длительности демонстрирует, что толчки тока
длительнее так называемого полезного времени имеют одинаковую пороговую
силу вне зависимости от их длительности; эту силу называют реобазой.
Более краткие толчки тока имеют тем более высокий порог, чем они короче (закон
гиперболы).
Основная причина последней зависимости заключается в
действии мембранной емкости. Очень краткие токи просто не успевают разрядить
эту емкость до КУД. Поэтому такие токи необходимо усиливать настолько, чтобы
коротким толчком было унесено пороговое количество зарядов (Qnop). Однако Qnop = Iпорt, откуда и возникает гиперболическая зависимость между
пороговыми I и t (закон гиперболы).
Приведенное объяснение кривой силы—длительности изложено
несколько упрощенно, так как здесь не учитывается ЛО, добавляющийся к
деполяризующему толчку в пороговой точке. Помимо реобазы важным параметром
кривой силы—длительности является хронаксия — минимальная длительность
раздражающего тока в две реобазы. У разных объектов хронаксии различны. Это
связано главным образом с различиями входной емкости, точнее величины т,
которая равна Rвх Свх.
Рассмотрим действие длительного подпорогового толчка
деполяризующего тока (рис. 1.23). Такой ток в процессе действия вызывает физический
катэлектротон, т. е. постоянно поддерживающееся сниженное значение МП.
Применяя на этом фоне дополнительные краткие деполяризации, можно измерить
|
|
|
Рис 1.23 Изменение мембранного потенциала и критического уровня
деполяризации при действии длительных токов разного направления А — при деполяризации; Б
— при гиперполяризации: АрР — анодоразмыкательное раздражение при
сниженном пороге, КД — катодная депрессия (рост порога), ФАэт —
физиологический анэлектротон (порог повышен), ФКэт — состояние
физиологического катэлектротона (порог снижен); стрелками указаны текущие
величины порога раздражения. |
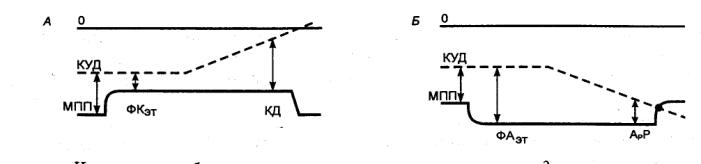
порог при катэлектроне (Iпор). Впервые моменты он снижен, так
как снижен МП при неизменном КУД. Это снижение порога называют физиологическим
катэлектротоном. Но при длительном катэлектротоне порог растет из—за
сильного смещения КУД в позитивную сторону. Это катодная депрессия, связанная с
инактивацией Na—каналов.
При действии гиперполяризующего тока порог для
деполяризующих толчков сначала повышен, так как повышен МП при неизменном КУД.
Этот рост порога называют физиологическим анэлектротоном. Затем порог
падает из—за смещения КУД в негативную сторону. Последний эффект связан с
устранением стационарной инактивации части Na—каналов.
Если гиперполяризующий ток достаточно силен и длителен, то
его выключение может иногда сопровождаться развитием ПД или даже серии ПД (анодоразмыкателъное
раздражение). При этом, однако, нет нарушения полярного закона, так как при
выключении гиперполяризующего тока МП падает до исходного уровня, а КУД
оказывается смещенным к нему. И если МП падает до КУД, то, естественно,
наступает раздражение.
Изменение электровозбудимости при возбуждении. Электровозбудимость обратно
пропорциональна порогу электрического раздражения; ее обычно измеряют на фоне
покоя. При возбуждении эта величина изменяется. Изменение электровозбудимости в
ходе развития пика ПД и после его завершения включает последовательно несколько
фаз.
1. Абсолютная рефрактерностъ,
т. е. полная невозбудимость, определяемая сначала полной занятостью
«натриевого» механизма, а затем инактивацией натриевых каналов (это примерно
соответствует пику ПД).
2. Относительная рефрактерностъ,
т. е. сниженная возбудимость, связанная с частичной натриевой инактивацией и
развитием калиевой активации. При этом порог повышен, а ответ (ПД) снижен.
3. Экзальтация (повышенная
возбудимость, супернормальность, появляющаяся от следовой деполяризации).
4. Субнормальность (пониженная возбудимость),
возникающая от следовой гиперполяризации. Амплитуды ПД на фазе следовой
негативности несколько снижены, а на фоне следовой позитивности — несколько
повышены.
Наличие рефракторных фаз обусловливает прерывистый
(дискретный) характер нервной сигнализации, а ионный механизм ПД
обеспечивает стандартность ПД (нервных импульсов). В этой ситуации изменения
внешних сигналов кодируются лишь изменениями частоты ПД (частотный код)
или изменением количества ПД.
Фазы измененной возбудимости, сопровождающие развитие ПД,
определяют возможности ритмической активности нервной клетки (волокна).
Максимально возможный ритм активности, лимитированный
длительностью абсолютной рефракторной фазы (АРФ), часто обозначают как
показатель лабильности (Л) — функциональной подвижности (Н. Е.
Введенский). У нервных волокон показатель Л достигает 400 в 1 с.
Распространение физического электротона. Физический электротон — это
измененная величина МП, создаваемая пропусканием через данный участок мембраны
электрического тока от внешнего (для данного участка мембраны) источника.
Различают катэлектротон (Кэт), создаваемый выходящим
током, и анэлектротон (Аэт), создаваемый входящим током. Приставки кат—
и ан— указывают на то, что такие токи и состояния возникают в области
приложения к волокну катода и анода.
|
|
|
Рис. 1.24 Распространение физического электротона по
мембране гигантского нервного волокна А — распределенный выход тока от
внутриклеточного источника; Б —
эквивалентная электрическая схема для правой части волокна в районе выхода
тока; В — затухание
злектротонических изменений МПП вдоль волокна (l) в моменты включения (t1), протекания (t2) и выключения (t3) тока; /, II — процессы возникновения и исчезновения
электротона; Г —
развитие электротонического эффекта прямоугольного стимула (Ст) во времени
для точек l0 и l1. |
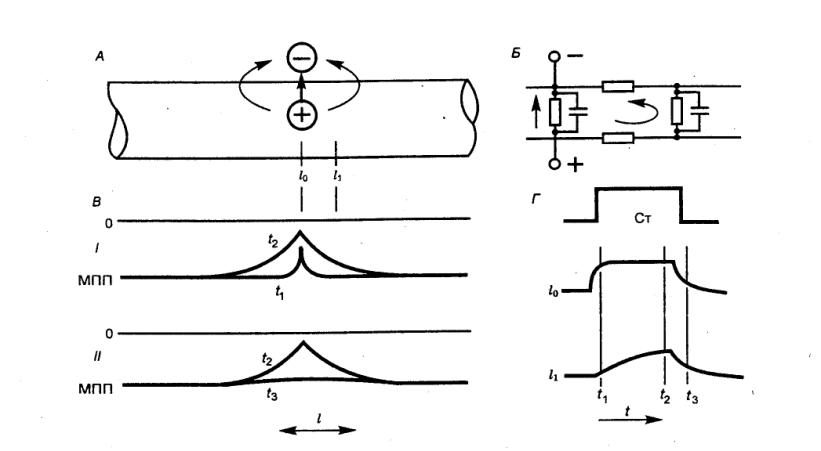
Физический электротон — «пассивное» явление, определяемое
внешним током и физическими свойствами покоящейся мембраны. При действии анода,
т. е. входящего тока, происходит дозарядка мембранной емкости до некоторого
более высокого потенциала. При действии катода, т. е. выходящего тока,
происходит разрядка мембранной емкости. Аналогично источнику выходящего тока
действуют перерезка или прокол мембраны, закорачивающие заряженную (МПП)
мембрану саму на себя. Во всех этих случаях электротон (Эт) развивается по
определенным единым законам. Ниже описан простейший случай действия точечного
источника входящего тока в гигантском аксоне кальмара.
Рассмотрим сначала Аэт в области приложения электрода. В
момент включения и выключения прямоугольного толчка входящего тока (эта форма
тока является простейшей и вместе с тем свойственной реальным элементарным
генераторам тока — одиночным каналам) Аэт не вполне точно повторяет форму этого
толчка. Передний и задний фронты Аэт оказываются сглаженными. Это определяется
наличием мембранной емкости (См). Постоянная времени разрядки этой емкости
(τ = RмCм) составляет около 1 мс. Ясно, что при этом толчки с t < τ дают существенно сниженный
Эт. Величина физического электротона (Аэт и Кэт) при прочих равных условиях
пропорциональна силе тока (I) и величине сопротивления мембраны (Rм), точнее величине
входного сопротивления объекта (Rвх), включающего Rм и RI (сопротивление аксоплазмы).
В шарообразной клетке Rвх ≈ Rм/S, где Rм — удельное сопротивление мембраны,
S —
площадь мембраны (сопротивлением аксоплазмы RI можно пренебречь). В нервном
волокне, о котором идет речь здесь и далее, ток, подаваемый от точечного источника
(рис. 1.24), проходит через всю мембрану, но имеет разную плотность вблизи и
вдали от электрода. В этом случае, в отличие от шарообразной клетки, Rвх определяется довольно сложной
формулой:
|
|
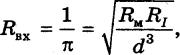
где Rм и RI
— удельные
сопротивления мембраны и аксоплазмы. Из этой формулы следует, что Rвх сильно зависит от d — диаметра волокна, а именно: Rвх ≈ 1/√d3.
Действительно, при
одной и той же силе тока электротонические изменения на мембране тем больше,
чем тоньше данное нервное (или мышечное) волокно. Этим обстоятельством, к
примеру, объясняют тот факт, что во многих случаях химические сигналы
(медиаторы) специализированных рецепторных клеток (например, в сетчатке,
спиральном (кортиевом) органе, в электрорецепторах) воспринимаются тонкими чувствительными
нервными окончаниями (снабженными соответствующими хеморецепторами), так как
только в тонких волокнах слабый ток хеморецепторного участка способен создать
значительный катэлектротон, необходимый для генерации ПД (нервного импульса).
Электротон, возникший в связи с
действием точечного источника, распространяется вдоль нервного волокна. Это
определяется кабельными свойствами нервного проводника: Дм велико, а
относительно низко (аналогия с изолированным проводом). Если источник тока
действует достаточно долго, то вдоль волокна (в обоих направлениях от
электрода) устанавливается определенный градиент электротона (около анода—
градиент гиперполяризации, около катода — деполяризации). Величина электротона (U) экспоненциально убывает с расстоянием (х) при
удалении от источника:
U = U0e—x/λ,
где uq —
электротон в точке приложения электрода; λ (ламбда) — постоянная длины, на
которой электротон снижается в е раз (т. е. до 37% Uo). Согласно этой формуле, при х = λ U
= 37% U0;
при х = 4λU = 2% u0. Постоянная длины зависит от Rм, RI и диаметра волокна (d).
|
|
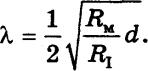
Таким образом, λ тем больше, чем больше Rм и d.
Следовательно, в толстых волокнах Эт при прочих равных условиях
распространяется дальше, чем в тонких.
Специального внимания заслуживают моменты становления и
исчезновения градиентов Эт в нервном волокне. Здесь особую роль играет
мембранная емкость (См). В момент включения источника входящего тока См берет
его ток на себя, шунтируя таким образом Rм в данной точке. При этом См
заряжается через RI (рис. 1.24) (в случае катэлектротона — разряжается
через RI). Так как величина RI тем больше, чем дальше
соответствующий участок мембраны, зарядка (или разрядка) См разноудаленных
участков мембраны происходит с разной скоростью. Быстрее прочих заряжается
(разряжается) мембрана, ближайшая к источнику, медленнее всех — наиболее
удаленная часть мембраны.
Таким образом, электротон распространяется от точки
исходного изменения МП (подэлектродного участка) в соседние области, но это
распространение идет с затуханием (декрементом).
При прочих равных
условиях скорость распространения Эт пропорциональна величине λм и обратно
пропорциональна величине См. При выключении источника тока Эт исчезает в силу
разрядки См через Лм в каждой точке волокна (в случае катэлектротона — в силу
дозарядки). Но ближний и дальний Эт исчезают не одинаково быстро. Более
медленному спаду дальнего Эт способствует выравнивающий ток, текущий между
ближним и дальним участками мембраны.
Распространение Эт — важный механизм клеточной сигнализации.
С помощью
распространения Эт (главным образом Кэт) осуществляется функциональная связь
между различными участками мембраны в клетках, не генерирующих ПД (глия,
эпителий, так называемые тонические мышечные волокна). Электротонические
сигналы используются в телах нейронов и в дендритах таких мультиполярных
нейронов позвоночных, как α—мотонейроны, клетки Пуркинье мозжечка, гигантские
пирамидные клетки коры и крупные нейроны ретикулярной формации ствола мозга. Во
всяком случае, показано, что электрические сигналы подпороговой силы,
генерируемые в дендритах, регистрируются в соме в виде слабых колебаний ее
потенциала.
В конце XVIII в. в результате плодотворной научной дискуссии
между знаменитыми итальянскими учеными Л. Гальвани и А. Вольта была доказана электрическая
природа МПП в скелетных мышцах лягушки. После этого многие специалисты
предполагали, что и нервное возбуждение передается по нервам, как по проводам.
Однако известный немецкий естествоиспытатель Г. Гельмгольц, измерив скорость
распространения импульса возбуждения по нерву, определил, что она составляет
примерно 10 м в секунду, т. е. неизмеримо меньше скорости движения
электрического сигнала по обычным проводникам. Как известно, последняя близка к
скорости света.
Понять природу электрических явлений в нервных волокнах
помог опыт французского ученого А. Лилли. Он в буквальном смысле сделал
«железный нерв», погрузив очищенную проволоку в концентрированную азотную
кислоту. При этом в результате окисления на поверхности металла образовалась
защитная пленка. Экспериментатор сделал царапину, тем самым повредил пленку
окисла и увидел, что это повреждение распространяется по поверхности проволоки.
Как оказалось, от поврежденного участка к окружающим его областям течет электрический
ток, создаваемый химической реакцией между железом и кислотой. Атомы железа
распадаются на ионы и свободные электроны. Первые тут же переходят в раствор
кислоты, а вторые выходят через неповрежденную пленку в соседних участках.
Электрохимические реакции наиболее интенсивны около повреждённых участков, где
и поток электронов имеет наибольшую плотность. При этом защитная пленка
разрушается, и это «повреждение» смещается на новое место. Процесс разрушения
пленки происходит с запаздыванием из—за ее емкости, вызывающей замедленный рост
напряжения. После этого обнаженные области проволоки вновь покрываются защитной
пленкой, которая не разрушается, т. к. электрохимическая реакция успела уйти по
проволоке уже далеко.
Примерно так же, как в модели А. Лилли, распространение
электрохимической реакции вызывается током, в свою очередь запускаемым этой
реакцией, проводится и волна возбуждения по нервным волокнам. Проведение ПД —
это вроде эстафеты, в которой каждый участок вдоль волокна выступает сначала
как раздражаемый, а затем как раздражающий последующий участок. Механизм
распространения ПД включает в себя два компонента: раздражающее действие
катэлектротонического сигнала на соседний участок электровозбудимой мембраны и
возникновение ПД в этом соседнем раздражаемом участке мембраны. В отличие от
распространения электротона проведение возбуждения происходит без снижения
амплитуды ПД и без снижения скорости, т. е. бездекрементно. Проводится
информационный сигнал значительно медленнее, чем в той же железной проволоке.
Это и понятно. С точки зрения любого электротехника, нервное волокно —
никудышный проводник: сопротивление и емкость его протоплазмы чрезмерно велики.
Сопротивление такого проводника длиной
|
|
|
Рис.
1.25 Зависимость дальности (I)
раздражающего действия электротонической петли (и,
соответственно, скорости распространения ПД) от величины λ (А) и
амплитуды ПД (Б) Апд1 и апд2 — разные амплитуды потенциала действия; l1 ,I2 — разные дальности действия;
λ1 и λ2 — различные величины λ. |
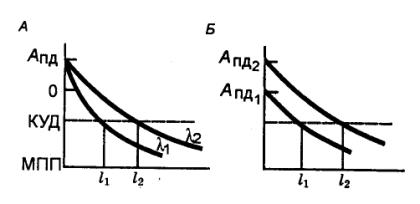
1 м и толщиной 1 мкм выражается
огромной цифрой — 10 Ом. Подобное сопротивление имел бы кабель длиной 10 км.
Проведение возбуждения в нервных
волокнах зависит от амплитуды ПД (величины электротонического сигнала,
порождаемого ПД) и от пороговой деполяризации, точнее — от соотношения этих
двух величин, называемого гарантийным фактором (ГФ). Обычно ГФ достаточно высок
(т. е. ПД в 5—7 раз превышает порог для его возникновения). Если ГФ = 1, то
проведение ненадежно, если ГФ < 1, то проведения нет. Ясно, что чем выше ГФ,
тем эффективнее раздражение соседнего участка.
Скорость распространения ПД в тонких
немиелинизированных (т. е. не имеющих миелинизированной оболочки) нервных
волокнах, как и скорость распространения электротона, пропорциональна толщине
волокна; она тем больше, чем толще волокно. Это и понятно: при большом диаметре
волокна снижается сопротивление электрическому току вдоль оси волокна (рис.
1.25).
Природа опробовала такой способ
передачи, создав гигантский (толщиной 0,5—1 мм) аксон кальмара, скорость
нервного импульса в котором 20—30 м/с, а время пробега вдоль всего аксона —
меньше сотой доли секунды. Однако такая значительная скорость достигнута
«дорогой ценой». У позвоночных животных такая же скорость достигается в
волокнах толщиной всего 5 мкм.
Пониманию электрохимической природы
передачи возбуждения по нервам способствовали также опыты английского физиолога
А. Ходжкина. Нервное волокно он располагал на изолированные металлические
пластинки. Эта манипуляция скорости проведения не меняла. Однако замыкание
пластинок, приводившее к уменьшению внешнего сопротивления, вызывало ускорение
проведения нервного импульса. Эффект наблюдался и в случае перерезки нервного
волокна на соединенных пластинках. Казалось бы, чем это не протез нерва? Однако
в отсутствие трофических влияний сомы, передаваемых с помощью
аксоплазматического транспорта, периферическая культя нерва дегенерирует.
Японский физиолог И. Тасаки
последовательно перерезаал волокна в нерве лягушки и обнажал на небольшом
участке одиночное волокно. Препарат помещался в питательный раствор на
сдвинутые стеклянные пластинки. При раздвижении стекол волокно повисало в
воздухе. Помещенное в этот воздушный мостик—изолятор, нервное волокно проводило
возбуждение до тех пор, пока не высыхало. Если же высушить не все волокно, а
только его маленькую часть, покрытую миелиновой оболочкой, то проводимость
нерва легко восстановить, соединив любым проводником электрического тока два
соседних перехвата Ранвье. В том же случае, когда высыхал сам перехват Ранвье,
передача нервного импульса прекращалась.
Итак, этими экспериментами было
убедительно показано, что участок между перехватами Ранвье — это электрический
кабель. Очень тонкий, с чрезвычайно высоким продольным сопротивлением кабель,
протоплазма которого тоже имеет высокое удельное сопротивление. Вот почему при
проведении ПД по волокну петли тока замыкаются через внешнюю проводящую среду
(рис. 1.26, 1.27).
Проведение возбуждения в миелинизированных нервных волокнах,
характерных для «скоростных линий» нервной связи у позвоночных животных,
осуществляется тем же способом, что и в немиелинизированных. Однако здесь
существуют некоторые важные особенности. Миелиновая жировая оболочка, спирально
навернутая на нервный проводник, напоминает обмотку электрических кабелей.
Миелиновые муфты, каждая из которых формируется одной шванновской клеткой,
являются хорошими электроизоляторами: у миелина R = 0,16 МОм • см, С = 0,005 мкФ/см.
Поэтому в миелинизированном волокне, в отличие от
немиелинизированного, проводят электрические токи и генерируют в ответ на них
ПД, по существу, только узкие (l = 1 мкм) оголенные участки,
расположенные между муфтами, — перехваты Ранвье. Распространение ПД здесь
осуществляется скачкообразно — сальтаторно — от перехвата к перехвату.
Здесь находится и генератор, и усилитель (ретранслятор) электрического
импульса. Генератор возбуждается только в том случае, когда ток течет не только
вдоль, но и поперек волокна, т. е. выходит через поверхность волокна изнутри
наружу. Этот ток возбуждает генератор нервного импульса всякий раз, когда он
меняет разность потенциалов между внутренней и наружной поверхностями мембраны
на определенную величину (примерно 20 мВ).
Миелиновые сегменты гораздо протяженнее перехватов (l
= 1000—2000 мкм против 1 мкм), поэтому такая форма функционирования проводника
экономична в смысле расхода ионов, нагрузки на ионный насос и обеспечивает
существенно большие скорости проведения возбуждения (рис. 1.26). В
миелинизированных волокнах v = Kd, где К — коэффициент пропорциональности (для
амфибий К = 2, для млекопитающих К = 6). Таким образом, в
волокнах с d = 20 мкм скорость v у млекопитающих равна примерно 120 м/с (мм/мс).
Протяженность возбужденного участка (L) нервного волокна при развитии пика одиночного ПД
определяется следующим образом: L = tv. В самом деле, если ПД возник в некоторой точке и
распространяется вдоль по волокну, то к моменту, когда в начальной точке этот
ПД завершится, он проделает путь L = tпд (в начальной точке) Удд (рис.
1.26). В гигантском аксоне кальмара L = 1 мс • 25 мм/мс = 25 мм. В
миелинизированных волокнах L = 0,4 мс • 120 мм/мс = 48 мм. В тонких
немиелинизированных волокнах при tпд = 1 мс и vпд = 1 мм/мс протяженность
возбужденного участка L = 1 мс • 1 мм/мс = 1 мм.
Проведение ПД в участках резкого изменения свойств
нервного проводника, таких как область перехода миелинизированного нервного
волокна в оголенное и разветвленное окончание, имеет свои особенности. Площадь
мембраны нервного окончания обычно значительно (на два порядка) больше площади
перехвата Ранвье. При таком соотношении площадей проведение ПД из перехвата в
окончание (например, моторное) несколько замедлено и имеет сниженный ГФ. Это объясняется падением
плотности локального раздражающего тока в окончании.
|
|
|
Рис. 1.26 Распространение ПД в
немиелинизированном (А) и миелинизированном (Б) волокнах и схема формирования
пространственной «волны возбуждения». бегущей вдоль нервного волокна (В) Протяженность
возбужденного участка (L)
равна скорости (v) распространения пика ПД, умноженной на его длительность tпд. |
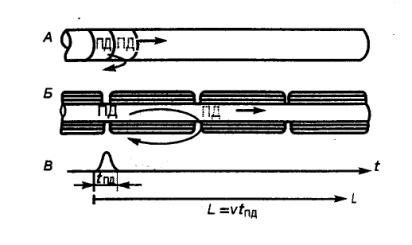
Проведение из окончания (например,
сенсорного) в перехват ускорено и облегчено из—за концентрации тока ПД окончания
в перехвате, хотя амплитуды ПД в перехвате и в терминали могут быть
одинаковыми. Аналогичная ситуация наблюдается в участках разветвления
магистральных нервных волокон (а также проводящих ПД дендритов); так как
рабочая площадь мембраны в неразветвленной части меньше, чем в разветвленной,
то проведение ПД из первой во вторую происходит с некоторым замедлением и при
снижении ГФ. Наоборот, синхронные ПД ветвей взаимно облегчают себе вход в
неразветвленную часть проводника.
Наконец, сходные явления имеют место
в участках резкого изменения диаметра проводника, например в районе перехода
тела нейрона в начальный сегмент аксона или дендрит. Здесь взаимодействующие
соседние участки мембраны также имеют существенно разную по величине рабочую
площадь. И это обстоятельство при прочих равных условиях способствует
проведениию ПД из расширенного сегмента в суженный, например из сомы в дендрит,
и затрудняет проведение в противоположном направлении.
Электрофизиология нервного ствола. Нервный ствол, или нерв, представляет
собой пучок множества нервных волокон, покрытых у позвоночных общими
эпителиальной и соединительнотканной оболочками.
Обычно нерв включает в себя волокна
различного типа и разного диаметра. Например, седалищный нерв лягушки содержит
двигательные волокна (аксоны мотонейронов), чувствительные (аксоны
чувствительных клеток) и автономные (аксоны нейронов симпатических ганглиев).
Моторные и наиболее толстые чувствительные волокна этого нерва миелинизированы,
симпатические — не имеют миелиновой оболочки, покрыты одним слоем шванновских
клеток.
Все эти волокна в покое обладают
поляризованной поверхностной мембраной. Если нерв перерезать и соединить его
поврежденную и продольную поверхность с регистрирующим устройством, то
отводится потенциал повреждения, или потенциал покоя (ПП).
Потенциал нормальной точки нерва относительно поврежденной имеет обычно
небольшую величину 20—30 мВ, он меньше МПП волокон нерва, что объясняют
шунтирующим действием межволоконных щелевых пространств. Если в сегменте нерва,
расположенном между электродами, заменить (перфузией) межклеточную жидкость на
раствор сахарозы (сахарознъй мостик), то ПП нерва «поднимается» (увеличение
отрицательного значения потенциала в поврежденном участке или внутри клетки
условно обозначают как рост потенциала) до —70 мВ. Его величина, по существу,
отражает величину МПП наиболее толстых волокон, генерирующих основную часть
внешнего тока.
Нервы у позвоночных состоят из трех
основных групп волокон (А, В и С), различающихся по электровозбудимости,
скорости развития ПД, его компенсации и скорости проведения (все эти показатели
в ряду А—В—С падают). Группа А включает наиболее толстые хорошо
миелинизированные моторные и чувствительные волокна; группа В —
слабомиелинизированные, преганглионарные волокна автономной нервной системы;
группа С — немиелинизированные, постганглионарные (симпатические)
волокна. Группа А неоднородна, в ней можно выделить подгруппы альфа (α), бета (β), гамма (γ), дельта (δ);
в этом ряду названные показатели тоже падают. Соотношения свойств этих групп
волокон демонстрируются в табл. 1.2 и 1.3.
Необходимо заметить, что указанные
соотношения порогов электрического раздражения групп волоков не отражают
точного соотношения электровозбудимости их мембран. Относительно высокие пороги тонких волокон при их
Т а б л
и ц а 1.2
Волоконный
спектр седалищного нерва лягушки
|
Группы
волокон |
Диаметр,
мкм |
Пороги
электрического раздражения (относительно Аа) |
Скорость
проведения, м/с |
|
Аα |
18,5 |
1—1,6 |
42 |
|
Аβ |
14 |
1,&—2,9 |
25 |
|
Аγ |
11 |
3,3—4,5 |
25 |
|
С |
0,4—0,5 |
100—300 |
2,5 |
Волоконный спектр нервных
стволов кошки Т а б л
и ц а 1.3
|
Группы
моторных и сенсорных волокон (по Эрлангеру и Гассеру) |
Диаметр,
мкм |
Пороги электрического раздражения
(относительно Аα.) |
Длительность
пика ПД* |
Отрицательный
следовой потенциал (ОСП) |
Положительный
следовой потенциал |
Скорость
проведения, м/с |
||
|
Длительность М/с |
амплитуда СП,% к
амплитуде ПД |
Длительность М/с |
амплитуда СП,% к
амплитуде ПД |
|||||
|
Аα |
13—22 |
1,0 |
0,4 |
15—20 |
5 |
40—60 |
0,2 |
70—120 |
|
АР |
8—13 |
|
|
|
|
|
|
40—70 |
|
Aγ |
4—8 |
|
|
|
|
|
|
15—40 |
|
Aδ |
1—4 |
|
|
|
|
|
|
5—15 |
|
В |
1—3 |
11,7 |
1,2 |
ОСП нет |
|
100—300 |
10 |
3—14 |
|
С |
0,5—1,0 |
100,0 |
2,0 |
50—80 |
|
300—1000 |
|
0,5—2 |
* Приблизительно ту же величину имеют и абсолютные
рефракторные фазы.
раздражении в нервном стволе определяются
в основном тем, что тонкие волокна по сравнению с толстыми обладают более
высоким входным сопротивлением. В них входит такая малая часть раздражающего
тока, что при пороговой силе для Aα—волокон она совершенно недостаточна
для создания на мембране более тонких волокон сколько—нибудь существенной
деполяризации. По этой же причине (высокое —RI) отводимые от ствола (внеклеточно)
ПД тонких волокон предстают значительно меньшими, чем ПД толстых волокон.
Суммарная электрическая активность нерва создается его волокнами, каждое из
которых генерирует свой стандартный по амплитуде и временным параметрам ПД,
распространяющийся в обе стороны от точки, к которой приложено раздражение.
Суммарный электрический сигнал нерва зависит от числа активных волокон, синхронности
активности, способа отведения и других обстоятельств.
Рассмотрим случай так называемого однофазного отведения,
при котором один отводящий электрод (активный) расположен на нормальном участке
ствола, а другой (индифферентный) — на поврежденном, где волокна деполяризованы
полностью (рис. 1.27). Пусть применяют искусственное раздражение и раздражающий
электрод (катод) находится достаточно близко (I = 3 мм)
|
|
|
Рис. 1.27 Развитие пика составного потенциала действия
нервного ствола (пучка) А — отведение ПД нерва с сахарозным мостиком (1); Б — рост амплитуды ПД при
усилении стимула, т. е. увеличении числа активных волокон; В — распределение петель токов при
активности одного волокна; Г —
то же, при активности всех волокон в пучке (в данном случае из двух волокон). |
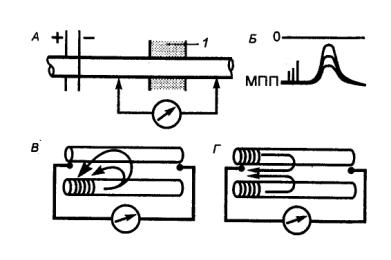
активного отводящего электрода, а
нерв помещен в непроводящую среду (масло или воздух). Здесь сильное одиночное
раздражение приводит к синхронному возбуждению всех волокон, при этом активный отводящий
электрод регистрирует суммарный ПД нерва, по форме приближающийся к ПД
отдельного Аα—волокна, но немного более затянутый во времени. Этот ПД нерва, однако,
не подчиняется правилу «все или ничего». При пороговом раздражении он ничтожно
мал, с увеличением силы стимулов постепенно растет, достигая максимума, равного
при обычных условиях 5—10 мВ, а в условиях сахарозного мостика — 50—100 мВ.
При дальнейшем увеличении силы
стимула этот ПД несколько удлиняется во времени. Все изменения амплитуды и
длительности пика ПД нерва при усилении стимула определяются ростом числа
активных волокон, подключением к низкопороговым и быстрым Аα—волокнам более высокопороговых
медленных β—, γ—, δ—волокон группы А, затем В— и, наконец,
С—группы.
Рост амплитуды суммарного («составного»)
ПД нерва при увеличении числа синхронно активных волокон не имеет в своей
основе истинного сложения их электродвижущих сил (ЭДС). Волокна в нерве
подключены не последовательно (лишь тогда бы их ЭДС складывались), а
параллельно. Причину роста составного ПД при увеличении числа активных волокон
можно понять, рассмотрев схему на рис. 1.27, из которой следует, что неактивные
волокна шунтируют активные. При активизации неактивных волокон этот шунт
снимается. (Кроме того, при этом падает суммарное внутреннее сопротивление
источника.)
Рассмотрим случай, когда при тех же прочих условиях
существенно (до 80—100 мм) увеличено расстояние между раздражающим
электродом (катодом) и активным отводящим электродом (рис. 1.28). При этом
в ответ на пороговые раздражения или при небольшом их превышении возникает в
общем такой же Аα—пик. По
мере роста предъявляемых стимулов этот пик не просто увеличивается, а
осложняется рядом дополнительных, следующих за ним, более поздних пиков. Это
Аβ—, Aγ—, Аδ—, В— и С—пики. Такое распределение — результат отставания от
Аα—импульса импульсов Аβ, Aγ—, Aδ—, В— и С—волокон, называемое
их дисперсией во времени. Степень дисперсии одиночного залпа
первоначально синхронных нервных импульсов тем больше, чем больше дистанция проведения
и чем больше различия в скорости проведения у импульсов волокон разных групп.
Рассмотрим вариант так называемого двухфазного
отведения ПД, при котором оба электрода расположены на нормальных
неповрежденных участках нерва. Это отведение применяют в тех случаях, когда
нервный проводник надо сохранить в целости. При двухфазном отведении картина
сложна, даже если дистанция проведения мала и нет существенной временной
дисперсии волоконных сигналов. В этом случае каждый из двух электродов отводит
свой
|
|
|
Рис. 1.28
Дисперсия во времени компонентов составного однофазного ПД нерва и
формирование двухфазного ПД I, II — отведения ПД при малой в большой дистанциях проведения; III, IУ — формы
составных ПД при этих дистанциях и разных силах раздражения; V. VI — двухфазное отведение и
формирование двухфазного ПД из однофазных ПД, отводимых от точек 1 я 2: при сильном раздражении и
большой дистанции проведения составной ПД распадается на ряд ПД, порождаемых
волокнами с разной скоростью проведения возбуждения. |
составной ПД (ПД в своей
точке), которые алгебраически складываются на входе регистрирующего прибора. Из
схемы (рис. 1.28) следует, что при этом сложении образуется двухфазная волна и
что в силу несимметричности ликов ПД первая фаза этой волны выше второй, а
вторая — длиннее первой. При большой дистанции проведения эти фазы, кроме того,
осложняются соответствующими дополнительными пиками.
Наконец, рассмотрим так называемое фокальное отведение
(рис. 1.29) пика ПД нервного ствола, расположенного в проводящей среде. При
таком отведении один электрод приближен к нерву, второй (индифферентный) —
«бесконечно» удален. Этот случай моделирует регистрацию электрического сигнала
нейрона или группы нейронов в мозгу с помощью внеклеточного микроэлектрода.
Такой вариант отведения проанализирован в опыте на седалищном нерве лягушки,
который был расположен на листе фильтровальной бумаги, смоченном раствором
Рингера. С помощью регистрации фокальным электродом потенциалов, возникающих в
разных точках проводящей среды в определенные моменты возбуждения нерва
(например, при достижении вершины Аα—пика ПД в средней части нерва), были
получены картины электрического поля в проводящей среде вокруг активного нерва.
Представленная на рис. 1.29 схема — это изображение
электрического поля на плоскости. Мысленно вращая рисунок вокруг оси нерва,
можно получить соответствующее объемное поле. Важно заметить, что нерв в тот
момент, когда он оказывается возбужденным в средней части, имеет вид генератора
с тремя полюсами — двумя плюсами по концам и минусом в средней части.
Электрическое поле в среде также имеет три соответственные зоны, разделенные на
плоскости линиями (а в объеме поверхностями) нулевых сдвигов потенциала (U). По мере удаления от нерва в любую
сторону величины сдвигов U падают, на краях фильтровальной бумаги они близки к
нулю.
При распространении возбуждения нерва (его составного ПД)
слева направо так же движется и порождаемое им электрическое поле в среде. При
этом электрод, находящийся на средней линии, регистрирует трехфазный сигнал
|
|
|
Рис. 1.29 Отведение пика распространяющегося ПД нерва
лягушки электродами, расположенными в проводящей среде на некотором
расстоянии от нерва Нерв
помещен на фильтровальной бумаге, пропитанной раствором Рингера: показаны формы
ПД, регистрируемые в месте входа волны возбуждения в участок, который
расположен на бумаге (I), в середине этого участка (2), в его конце (3) и за его пределами (4); объяснение см. в тексте. |
(+—+) тем более слабый, чем дальше этот электрод отнесен от нерва
(в поперечном к его оси направлении). Если отводящий фокальный электрод
помещают в месте зарождения поля ПД (на рис. 1.29 левый край фильтровальной
бумаги, где нерв выходит на нее из масляной ванночки, в которой он контактирует
с раздражающими электродами), то при прохождении ПД регистрируется двухфазный
сигнал (—+). Если же фокальный электрод помещают на правом краю бумаги, куда
нерв не доходит, а соответственно и ПД, то при прохождении ПД регистрируют
однофазный сигнал положительной полярности. Эти формы фокального электрического
сигнала, порождаемого полем проводящегося ПД, — трехфазная, двухфазная и
однофазная — характерны соответственно для случаев прохождения ПД мимо
электрода, зарождения ПД около электрода и ухода от него и, наконец, движения
ПД к электроду с остановкой «на полпути».
Все рассмотренные до сих пор
варианты записи электронейрограмм возникают при синхронной электрической
активности волокон нервного ствола в условиях синхронного электрического
раздражения нерва. Но в естественных условиях отдельные волокна нервного ствола
чаще получают асинхронное раздражение (тоже электрическое) из своих
индивидуальных источников, например моторные волокна из тел мотонейронов, а
чувствительные — из рецепторов. Волокна нервного ствола при этом работают
асинхронно, а чувствительные и двигательные, кроме того, проводят ПД в разных
направлениях. При этом суммарная электрическая активность нервного ствола
оказывается очень ослабленной, ее анализ весьма труден.
Электрические взаимоотношения
работающих соседних волокон в нервных стволах. На схеме (см. рис. 1.27) видно, что
соседние волокна подключены друг к другу как шунты через межклеточную щель.
Если одно из этих волокон работает, то внешние петли тока, порождаемого его ПД,
затекают в соседние волокна, используемые, таким образом, как часть внешней
проводящей среды. Сила тока этих петель при активности малого числа волокон
далеко не достаточна для раздражения. Поэтому в условиях асинхронной
активности волокна функционируют вполне изолированно друг от друга.
Однако при синхронной активации
значительной части волокон нерва их ПД порождает более сильный внешний ток,
приближающийся к пороговому для неактивированных (возбудимых) волокон. При этом
возможно раздражение неактивных волокон или, например, ускорение проведения
импульсов по более медленным волокнам за счет добавления соседнего
электрического влияния от более быстро проводящих. Этот эффект называют эфаптической
передачей возбуждения (от греч. ephapsis — прикосновение).
Если синхронно и в одной точке нерва
возбуждается большая часть его волокон, например все А—волокна, то возникает
еще один эффект: происходит взаимное вычитание внешних петель биотоков
соседних возбужденных волокон. Это приводит к снижению сил токов,
связывающих возбужденные участки волокон с покоящимися, подлежащими
раздражению. В итоге на несколько процентов падает скорость проведения их ПД.
1.1.5. Межклеточные пространства в
нервной системе
Сомадендритные комплексы нейронов и нервные волокна (аксоны)
в ЦНС окружены глиальными элементами. Щели между клетками, как правило, не
превышают 15 нм. Таким
образом, объем межклеточной жидкости, с которым возбужденные нейроны
осуществляют обмен ионами, невелик.
|
|
|
Рис. 1.30 Мембранный
потенциал глиальной клетки (астроцита) и его зависимость от наружной
концентрации К+. А — методика внутриклеточной регистрации мембранного потенциала; Б —
зависимость МПП от [К+]нар в стационарных условиях; В — изменения МП глиальной клетки при активации соседних
нейронов одним и тремя импульсами (обозначены стрелками), приводящей к
временному росту [К+] в межклеточной щели; Г — те же эффекты при ритмических раздражениях различными
частотами: 1 — капилляр, 2 — «ножка», клетки, 3 —
потенциометр, 4 —
межклеточные щели, 5 — нейрон, б —
глиальная клетка. |
При возбуждении нейроны принимают из межклеточной жидкости Na+ (или Са2+ и отдают в нее
К+, что может приводить при узости межклеточных щелей к изменению
ионного состава межклеточной среды.
С помощью калийселективных микроэлектродов показано, что при
ритмической активности нейронов мозга (как и мышечных волокон в мышцах)
концентрация свободного К+ в прилежащих межклеточных щелях может
возрастать до 10 ммоль/л и более. Это приводит к частичной деполяризации
нейронов, вследствие чего возможно еще более сильное их возбуждение (судорожные
разряды).
В поддержании концентрации К+ межклеточных щелей
в допустимых пределах большую роль играют глиальные клетки (астроциты и
др.).
Глиальные клетки не имеют электровозбудимости, т. е.
соответствующих каналов для Na+ и Ca2+, но обладают высокой проницаемостью
для ионов калия (высокая Рк). Их МПП приблизительно равен Ек
(рис. 1.30) и, таким образом, достаточно точно отражает величину (К+)нар,
что используют в экспериментах.
Астроциты связаны друг с другом проницаемыми для ионов
контактами и составляют синцитий, по которому может распределяться
принятый избыток К+. Это явление обозначают как эффект
пространственного буфера. По—видимому, аналогичную роль могут выполнять и
другие нейроглиальные элементы, в частности шванновские клетки, окружающие
периферические нервные проводники (у беспозвоночных, например у кальмаров) или
формирующие миелиновые муфты (у позвоночных). Глиальные элементы помимо
отмеченных функций (изоляционной и участия в ионном гомеостазе) обладают и
иными, например, участие в обмене медиаторов.
Потенциалы действия, развивающиеся
на плазматической мембране аксона или сомадендритного комплекса, оказывают стимулирующее
действие на внутриклеточные процессы. Это связано с влиянием на ферменты клетки
проникающих в нее ионов Na+ и особенно Са2+
действующих через специальный белок калъмодулин.
Таким образом, распространяющийся ПД
влечет за собой быструю волну активации внутриклеточных процессов.
Вместе с тем внутри аксона (и других
частей нервной клетки) происходят закономерные перемещения материалов (белковых
частиц, органоидов), прямо не связанные с ПД и имеющие совсем другие скорости.
Эти перемещения материалов хорошо изучены в аксонах; здесь они получили
название аксонный транспорт. Существует два вида аксонного транспорта:
быстрый и медленный.
Быстрый аксонный транспорт — это, например, транспорт везикул,
митохондрий и некоторых белковых частиц от тела клетки к окончаниям аксона со
скоростью у млекопитающих 250—400 мм/сут. Он осуществляется специальным
транспортным механизмом. Этот транспорт не нарушается при отделении аксона от
тела клетки, но прекращается при разрушении внутриаксонных структур —
микротрубочек и нейрофиламентов (разрушение производится колхицином,
винбластином), а также при отсутствии в аксоне АТФ и Са2+ В связи с
этим полагают, что механизм, осуществляющий этот быстрый транспорт, подобен
механизму скольжения нитей при мышечном сокращении (см. разд. 1.2.4).
Считают, что нейрофиламенты
перемещаются («скользят») вдоль микротрубочек, имеющих боковые выросты,
которые, видимо, своими движениями и обеспечивают скольжение нейрофиламентов.
Энергия для этого процесса извлекается из АТФ, расщепляемого ферментативно при
объединении белковых структур нейрофиламентов и выростов микротрубочек в
присутствии Са2+. Один из белков играет роль АТФазы.
Транспортируемые частицы прикрепляются на нейрофиламентах и как бы перевозятся
на них. Этот процесс можно наблюдать и в выдавленной из аксона аксоплазме.
Быстрый аксонный транспорт везикул
(с медиатором для синапсов) происходит в дистальном направлении — антероградный
транспорт. Существует и обратный — ретроградный — быстрый транспорт
лизосом, везикул, мультивезикулярных тел, возникающих в окончаниях аксона в
ходе пиноцитоза, который протекает с захватом некоторых веществ (например,
ацетилхолинэстеразы, периферических факторов, регулирующих синтез белка в соме
нейрона, а также некоторых вирусов, токсинов и пероксидазы хрена — маркёра,
используемого в экспериментах). Скорость этого транспорта ≈ 220 мм/сут (у
млекопитающих). Скорости быстрого транспорта, и антероградного и ретроградного,
не зависят от типа и диаметра аксона, хотя у пойкилотермных (холоднокровных) позвоночных
они ниже, чем у гомойотермных (теплокровных).
Медленный аксонный транспорт — это перемещение всей массы белков
цитоплазмы (микротрубочек, нейрофиламентов, РНК, каналов, насосов и т. п.) в
дистальном направлении, создаваемое за счет интенсивных синтетических процессов
в перикарионе. Медленный аксоток обнаруживает себя при тугой перетяжке нерва
лигатурой, сдавливающей аксоны. При этом в дистальной части аксона диаметр
уменьшается, а в проксимальной — перед перетяжкой образуется вздутие — «наплыв
цитоплазмы».
Медленный аксоток движется со скоростью около 1—4 мм/сут. Он
прекращается при отделении сомы от аксона и не нарушается факторами,
разрушающими микротрубочки (колхицином, винбластином). Медленный аксонный
транспорт имеет особое значение в процессах роста и регенерации аксонов
(дендритов) и их разветвлений.
Синапсами (от греч. synapsis — соприкосновение, соединение)
называют специализированные контакты между нервными клетками или межДу нервными
и эффекторными клетками, используемые для передачи сигналов.
Синапсы можно классифицировать: 1) по их местоположению
и принадлежности соответствующим клеткам — нервно—мышечные,
нейро—нейрональные, а среди последних — аксосоматические, аксодендритические
синапсы; 2) по знаку их действия — возбуждающие и тормозящие; 3) по
способу передачи сигналов — электрические (в которых сигналы передаются
электрическим током) и химические, в которых передатчиком, трансмиттером
сигнала, или посредником, медиатором, является то или иное физиологически активное
вещество (см. табл. 1.4). Существуют и смешанные — электрохимические — синапсы.
Во всех синапсах содержатся такие компоненты, как
пресинаптическая мембрана, постсинаптическая мембрана и разделяющая их
синаптическая щель.
Электрические синапсы возбуждающего действия. Существование таких синапсов
предполагали давно. Возбуждающие электрические синапсы имеются в нервной
системе и беспозвоночных, и позвоночных животных, но наиболее изучены они у
беспозвоночных. Всем синапсам этого типа свойственны очень узкая синаптическая
щель (около 5 нм) и очень низкое удельное сопротивление сближенных пре— и
постсинаптических мембран для проходящего через них электрического тока.
Это низкое сопротивление, как правило, связано с наличием
поперечных каналов, пересекающих обе мембраны, т. е. идущих из клетки в клетку (щелевой
контакт) (см. рис, 1.31). В пре— и постсинаптической мембранах щелевого
контакта регулярно распределены коннексоны, находящиеся точно друг
против друга. Внутри них есть просвет, так что каждая пара расположенных по
одной линии коннексонов образует канал, через который сообщаются две клетки.
Диаметр каналов составляет около 1 нм. Каналы образуются белковыми молекулами
(полуканалами) каждой из контактирующих мембран, которые соединяются
комплементарно (см. рис. 1.32). Эта структура легкопроходима для электрического
тока.
Схема передачи возбуждения в электрическом синапсе подобна
схеме проведения ПД в гомогенном нервном проводнике. Здесь петля тока,
порождаемого пресинаптическим ПД, раздражает постсинаптическую мембрану.
Важно заметить, что поперечные каналы объединяют клетки не
только электрически, но и химически, так как они проходимы для многих
низкомолекулярных метаболитов. Поэтому возбуждающие электрические синапсы с
поперечными каналами формируются, как правило, между клетками (например
нейронами) одного вида специализации.
Электрические синапсы, передающие возбуждение, — не вполне
однородная группа. Они различаются по значению коэффициента передачи (Кп)
электрического сигнала, т. е. по отношению получаемого изменения потенциала
(ΔU) на постсинаптической мембране к задаваемому ΔU на пресинаптической мембране и по
отсутствию или наличию выпрямляющих свойств, т. е. по
„
|
|
|
Рис. 1.31 Ультраструктура щелевого контакта — нексуса. |
|
|
|
Рис.
1.32 Строение и работа возбуждающего
(электротонического) синапса септированного аксона А — раздражение постсинаптической клетки (2) петлей тока ПД пресинаптической
клетки (1); Б — участок
близкого прилежания пре— (1) и
постсинаптической (2) мембран с поперечным каналом, обеспечивающим протекание
ионного тока; В — соотношение во времени (t) пре— (1) и постсинаптического (2) ПД. Стрелкой показано направление тока. |
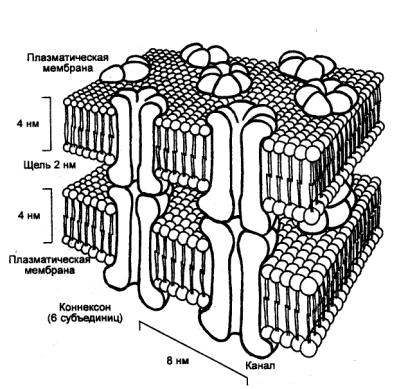
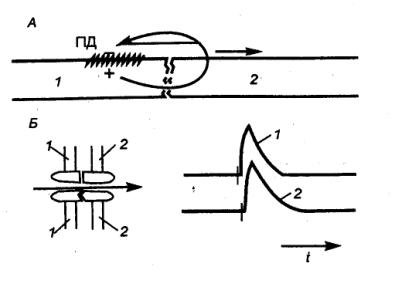
тому, передается
ли в них электрический сигнал двусторонне или односторонне. Рассмотрим
конкретные примеры.
У кольчатых червей и раков есть так называемые септированные
гигантские аксоны, состоящие из последовательно соединенных отростков
нервных клеток. Эти отростки связаны между собой щелевыми контактами —
электрическими синапсами с двусторонней передачей. Удельное сопротивление септы
(т. е. пары мембран, пронизанных поперечными каналами) здесь очень низко и
составляет примерно 1 Ом • см2 (при Rм = 1000 Ом • см2 ).
Однако септы имеют малую площадь и у каждой из них общее R ≈ 0,2 МОм. Поэтому в синапсе Кп
= 0,37, а передача ПД по той же причине происходит с некоторой задержкой (0,05
мс).
Аналогичные электрические синапсы, но с меньшим
Кп(≈0,15 ... 0,19) существуют между некоторыми нейронами (аксонами,
дендритами) в нервной системе моллюсков, а также в мозгу рыб и млекопитающих.
Через эти синапсы пресинаптические ПД не передаются, а проходят лишь
порождаемые ими электротонические подпороговые сигналы. Такие синапсы
способствуют синхронизации разрядов связанных клеток при их общем раздражении
из других источников.
Электрический синапс может иметь высокий Кп и обеспечивает распространение ПД лишь в тех
случаях, когда постсинаптическая клетка меньше пресинаптической или хотя бы не
слишком превосходит ее по размерам. Иначе происходит резкое падение плотности
пресинаптического тока на постсинаптической мембране.
Пример электрического синапса с односторонней передачей
возбуждения — синапс между латеральным гигантским волокном (Л—аксоном
командного нейрона) и гигантским моторным волокном (М—аксоном мотонейрона) у
рака. В этом синапсе Кп в
ортодромном направлений (Л → М) равен 0,25, а Кп в антидромном направлении (М → Л)
составляет 0,005. По—видимому, антидромный сигнал закрывает каналы. При
амплитуде пресинаптического ПД, равной, например, 120 мВ, ΔU на постсинаптической мембране (в
моторном волокне) составит 30 мВ,
и этого достаточно для вызова ПД. При искусственном вызове
|
|
|
Рис. 1.33 Схема химической синаптической передачи |
|
|
|
Рис. 1.34 Ультраструктура нервно—мышечного синапса Вверху
слева: нервное окончание на мышечном волокне; на схеме рядом —
пресинаптическое окончание вместе с лежащей под ним складчатой мышечной
мембраной при большом увеличении. Внизу: еще большее увеличение: мембрана
пресинаптического нейрона с частично разъединенным внутренним и внешним
слоями, а под ней соответствующие слои субсинаптической мембраны мышцы.
«Частицы» — это ацетилхолиновые рецепторы и молекулы холинестеразы в
мембране. |
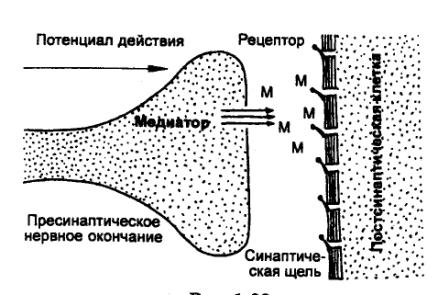
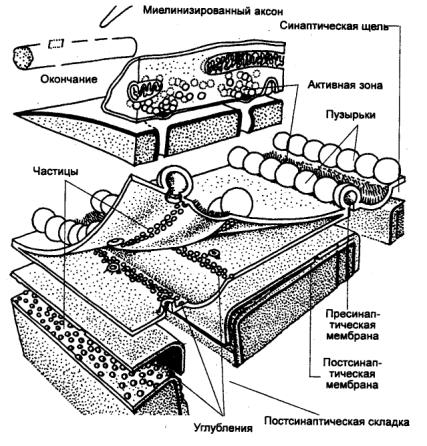
постсинаптического
ПД (в 120 мВ) на пресинаптической мембране возникает деполяризация, равная
примерно 0,6 мВ и совершенно недостаточная для вызова пресинаптического ПД. Задержка
при ортодромной передаче в этом синапсе равна 0,1 мс. Рассмотренный синапс,
таким образом, обеспечивает управление мотонейроном со стороны латерального
волокна.
Общими
свойствами возбуждающих электрических синапсов являются:
быстродействие (оно превосходит таковое химических
синапсов); слабость следовых эффектов при передаче (это свойство делает
электрические синапсы непригодными для интегрирования, суммации
последовательных сигналов);
высокая
надежность передачи возбуждения (при высоком Кп).
Однако возбуждающие электрические
синапсы не лишены некоторой пластичности, т. е. они могут возникать при
благоприятных условиях и исчезать при неблагоприятных. Например, при
повреждении одной из контактирующих клеток ее электрические синапсы с другими
клетками ликвидируются.
Химические синапсы возбуждающего
действия. В отличие
от электрических химические синапсы (рис. 1.33) имеют относительно широкую
синаптическую щель, составляющую 20—50 нм, и высокое сопротивление
синаптических мембран. Поперечных каналов, связывающих клетки, здесь нет.
Другим характерным признаком химического синапса является наличие в
пресинаптической нервной терминали большого числа пузырьков — пресинаптических
везикул диаметром около 50 нм. Эти везикулы заполнены медиатором —
химическим передатчиком (раздражителем).
Классическим представителем группы
химических синапсов является возбуждающий нервно—мышечный синапс
скелетной мускулатуры позвоночных (рис.
1.34), действующий с помощью медиатора ацетилхолина (Ах).
В нем, как и в любом химическом
синапсе, пресинаптический ПД не может петлей своего тока возбудить
постсинаптическую клетку; Яд здесь не превышает 0,001. Ток, который выходит через пресинаптическую мембрану,
здесь почти целиком уходит через
широкую синаптическую щель мимо постсинаптической
|
|
|
Рис. 1.35 Механизм химической передачи импульсов в межнейронном
синапсе От А до Д — последовательные этапы процесса. |
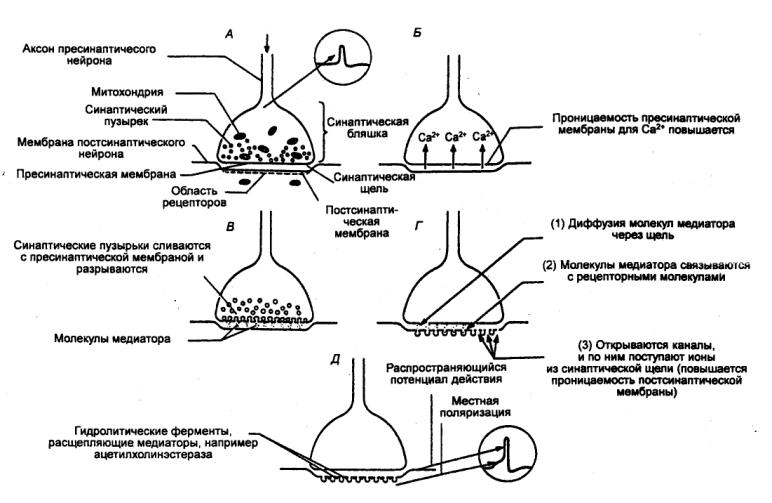
клетки, обладающей
значительным входным сопротивлением. Небольшая же часть этого тока, которая все
же входит в постсинаптическую клетку, вызывает лишь ничтожное изменение ее МП.
Суть работы химического синапса состоит в следующем (рис. 1.35).
Пресинаптический ПД работает как инициатор нейросекреторного акта. При развитии
ПД терминали (а также и при искусственной деполяризации) в нее из среды входят
ионы Са2+. Это стимулирует практически синхронный выброс медиатора в
синаптическую щель из 100—200 пресинаптических везикул, каждая из которых
содержит порцию — квант Ах. Большинство исследователей полагают, что этот
выброс медиатора осуществляется путем экзоцитоза — опорожнения везикулы
в синаптическую щель. Существует и другая точка зрения: квант медиатора
аккумулирован в особых участках пресинаптической мембраны — операторах, которые
и выбрасывают Ах в щель, а везикулы — это лишь депо Ах и других веществ.
Выход медиатора сильно зависит от
величины деполяризации терминали. Эта крутая зависимость объясняет резкое снижение выхода
медиатора при падении амплитуды ПД терминали. В нормальных условиях в ответ на
нервный импульс высвобождается около миллиона молекул Ах. (в каждом
кванте — везикуле — их примерно 104). Медиатор диффундирует к
постсинаптической мембране, где для него существуют рецепторы (холинорецепторы
— Хр). При взаимодействии Ах и Хр в последних открываются проницаемые для Na+ и К+ ионные каналы с d ≈ 0,65 нм. Так как
холинорецепторов и, соответственно, каналов много, сопротивление
постсинаптической мембраны сильно падает, что приводит к ее частичной
деполяризации, т. е. к развитию возбуждающего постсинаптического потенциала
(ВПСП).
Для нервно—мышечного синапса ВПСП называют потенциалом
концевой пластинки (ПКП). Потенциал концевой пластинки, в свою очередь,
создает ток, раздражающий соседнюю с постсинаптической электровозбудимую
мембрану мышечного волокна, что и порождает в ней ПД.
Таким образом, химическое звено в синапсе выполняет функцию
усилителя.
Синоптическая задержка, т. е. время от прихода нервного импульса до развития
постсинаптического ответа, в химическом синапсе составляет около 0,2—0,5 мс,
причем основная часть этого времени тратится на процесс секреции медиатора.
Химический синапс — это «вентильный механизм», рабочий сигнал в нем передается
односторонне (что не исключает обратных связей).
ВПСП (ПКП) — локальный потенциал, который электротонически
распространяется по мембране. С помощью внутриклеточных микроэлектродов и
методики фиксации потенциала можно изучить токи, проходящие через активируемую
постсинаптическую мембрану. В подобных экспериментах, варьируя ионный состав
среды, установили, что Ах открывает в постсинаптической мембране каналы,
пропускающие катионы Na+, K+, но не пропускающие
анионы Сl—.
Ток концевой пластинки (ТКП) и в клампе, и в обычных
условиях представляет собой результат движения ионов Na+ и К+ по их
электрохимическим градиентам. При обычных значениях МП (—80, —60 мВ) ток Na+ направлен внутрь, а ток К+
— наружу, причем первый больше второго и суммарный (здесь разностный) ток
является входящим.
Мембранный потенциал, при котором IK = INa и суммарный ток равен нулю,
называют потенциалом реверсии ТКП (ЕрТКП). По тем же причинам ПКП на
фоне нормальных МП (90, —70 мВ и т. д.) развивается как деполяризация. При МП,
равном нулю, ПКП отсутствует, при положительных МП развивается как
гиперполяризация.
Формы ТКП (в клампе) и ПКП (рис. 1.36) несколько
различаются. ТКП короче, основная его часть по длительности соответствует
восходящей фазе ПКП. Соответственно у ПКП лишь восходящая фаза создается
трансмембранными ионными токами. Относительно более медленный спад ПКП
определяется постепенной зарядкой мембранной емкости и пропорционален τм.
|
|
|
Рис. 1.36 Форма ПКП (А) и формы ТКП (Б) при фиксации потенциала на
разных уровнях (указаны значения в милливольтах) |
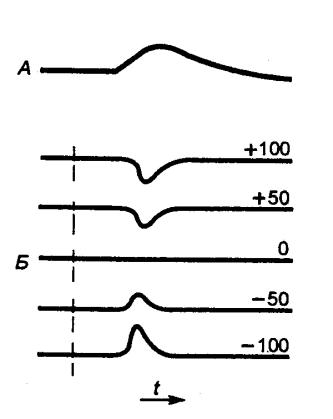
Помимо рабочих ПКП (ВПСП), инициируемых нервным
импульсом, в нервно—мышечных синапсах существуют спонтанные, обычно редкие миниатюрные
ПКП (ВПСП), составляющие доли милливольта и обозначаемые МПКП (МВПСП). Они
отражают спонтанный выброс одиночных квантов медиатора (т. е. содержимого
одиночных везикул, что составляет около 104 молекул Ах) и
реакцию на них постсинаптической мембраны. Как уже указывалось, рабочий ПКП
складывается из 100—200 МПКП, это число называют квантовым составом ПКП.
Амплитуда у многоквантового ПКП (30—40 мВ) больше, чем у
МПКП, по следующей причине. МПКП и ПКП порождаются током, возникающим в связи с
открытием каналов в постсинаптической мембране. Этот ток проходит
последовательно через открытые каналы и так называемое входное сопротивление
волокна. Так как входное сопротивление гораздо меньше, чем сопротивление канала
холинорецептора, то изменение потенциала мембраны тем больше, чем больше
действует каналов. При многоквантовости ПКП активируется больше
постсинаптических каналов, чем при МПКП.
С помощью микропипетки с оплавленными (гладкими) краями
кончика, прижимаемой к поверхности мышцы в районе синапса, можно осуществить
фиксацию потенциала и отведение токов от подлежащего малого участка постсинаптической
мембраны, который содержит лишь один Хр (см. рис. 1.19). Это методика пэч—клампа.
При введении в такую микропипетку раствора, содержащего Ax, Nа+ и др., холинорецептор
то открывает для ионов Na+ свой ионный канал в связи со
случайной рецепцией Ах, то закрывает его (при разобщении Хр и Ах).
Оказалось, что при этом ток одиночного Хр—канала развивается
мгновенно, сохраняет некоторое время постоянное значение и мгновенно исчезает
(«прямоугольная» форма). Средняя проводимость Хр—канала составляет 20—30 пСм, а
среднее время «жизни», т. е. открытого состояния канала, — примерно 1 мс. Форма
МТКП, как следует из рис. 1.19, отличается от формы тока канала. Причина этого
явления заключается в том, что при МТКП Хр—каналы открываются не совсем
одновременно, и это замедляет подъем МТКП, а время жизни у массы каналов сильно
варьирует, что создает экспоненциальный спад МТКП.
Рассмотрим некоторые подробности работы, возбуждающего
химического синапса на спинальном мотонейроне кошки. Этот нейрон имеет
шаровидную сому (d= 70 мкм), от которой отходит множество конических
дендритов и один аксон. Сома и дендриты густо покрыты нервными окончаниями —
синаптическими бутонами и отростками глиальных клеток. Синаптических бутонов на
одном мотонейроне может быть около 10 000. Нервные волокна, направляющиеся к
мотонейрону, на расстоянии в 100—20 мкм от него теряют миелиновую оболочку и
истончаются (до 0,5—2 мкм в диаметре). Синаптические бутоны содержат везикулы.
Синаптические щели имеют ширину 20 нм; МПП мотонейрона — 60—80 мВ.
Возбуждающий постсинаптический потенциал, возникающий в соме
при приходе одиночного залпа импульсов соответствующих афферентных волокон,
развивается как деполяризация с временем возрастания (tв), равным 1,5—2 мс, и постоянной
времени спадает), равной 4,7 мс. Амплитуда такого ВПСП, возникающего под
одиночным (унитарным) синаптическим входом (т. е. входом от одного афферентного
волокна), невелика (0,12—0,24 мВ) и стандартна. Она не зависит от силы
раздражения волокна. Но если раздражается многоволоконный дорсальный корешок
или периферический нерв, то ответный ВПСП больше и его амплитуда увеличивается
с усилением раздражения. Последнее объясняется увеличением количества синхронно
активных синаптических входов на данном нейроне, т. е. количества синхронно возникающих
элементарных ВПСП. Причины роста амплитуды здесь по существу те же, что и в
случае роста ПД нервного ствола (см. разд. 1.1.4). Важно заметить, что ВПСП
одиночных синаптических входов имеют очень низкий квантовый состав (один—два).
Возбуждающий постсинаптический потенциал мотонейрона
определяется трансмембранным ионным током, по времени соответствующим
восходящей фазе ВПСП. Этот ток возникает из—за того, что медиатор афферентов
(глутамат или вещество Р) открывает ионные каналы в постсинаптической
мембране. Характер трансмембранного ионного тока был определен в опытах с
электрофоретическими инъекциями различных ионов в мотонейроне через
микроэлектроды (у кошки и лягушки) и в экспериментах с вариациями межклеточной
ионной среды (у лягушки). Оказалось, что ток, порождающий ВПСП, и
соответствующий ток при фиксации потенциала (в «клампе») — это пассивный (т. е.
текущий по электрохимическому градиенту) натриевый ток, слабо шунтируемый
|
|
|
Рис. 1.37 Регистрация (А) и
временное течение ВПСП и ПД (Б) в мотонейроне спинного мозга позвоночного при
одиночной стимуляции группы возбуждающих (Iа) волокон дорсального корешка 1 — начальный сегмент аксона, 2 — сома—дендритный комплекс, 3 — потенциал действия
начального сегмента, 4 — потенциал
действия сома—дендритного комплекса, 5 — ВПСП. |
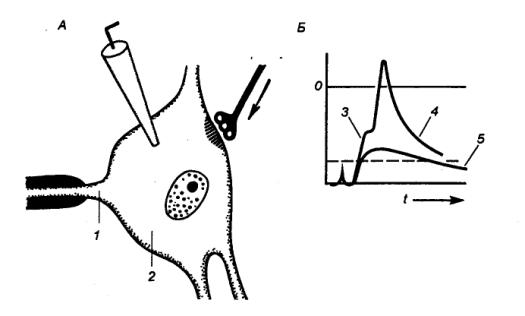
калиевым током. Потенциал реверсии
ВПСП составляет от 3 до 5 мВ. Падение Rвх (рост проводимости) в момент развития ВПСП невелико
— всего 5%.
Возбуждающие постсинаптические потенциалы соседних
синаптических входов на мембране начального сегмента аксона и сомы нейрона
суммируются между собой. Так же суммируются и последовательно возникающие
ВПСП. Когда общая деполяризация достигает определенной величины (КУД),
возникает ПД нейрона. Однако существует особенность. Дело в том, что аксонный
холмик (начальный сегмент аксона) имеет приблизительно в три раза более низкий
относительно сомы порог электрического раздражения. Ток, порождаемый ВПСП,
выходит через все внесинаптические участки мембраны нейрона, но в этих условиях
именно в аксонном холмике он порождает ПД. Считают, что холмик играет роль
триггера — «спускового крючка». Отсюда ПД распространяется в аксон, а также
ретроградно в сому (рис. 1.37). Последнее, видимо, необходимо для согласования
аксонального и соматического метаболизма.
На электрограмме, которую записывают с помощью
внутриклеточного электрода, введенного в сому, ПД начального сегмента аксона и
ПД сома—дендритного комплекса слиты в общий ПД, хотя эти компоненты можно
различить. Ступенька на переднем фронте ПД — по существу ПД начального
сегмента, сниженный расстоянием (λ в сома—дендритном комплексе составляет
около 400 мкм). Интересна особенность ПД сомы мотонейрона: он содержит те же
компоненты, что и аксональный ПД, только с более сильным следовым положительным
потенциалом.
В интернейронах спинного мозга кошки картина
синаптического возбуждения несколько иная. Например, в интернейронах — клетках
Реншоу — в ответ на одиночный возбуждающий синаптический залп регистрируется
длительный ВПСП, порождающий длинную серию ПД. По—видимому, в синапсах этих
клеток имеются условия для существенного продления действия медиатора (Ax), a внесинаптическая мембрана этих
нейронов обладает очень низкой аккомодационной способностью. В клетках Реншоу
триггерной зоной является не аксонный холмик, а соматическая мембрана,
прилежащая к синаптическим районам. Их очень краткий ПД (время пика — 0,5—1,0
мс) не имеет сильного следового положительного потенциала. Такими свойствами,
вероятно, обладают многие вставочные нейроны (интернейроны) ЦНС.
Среди нейронов ЦНС у разных животных, особенно у насекомых
(а также среди элементов сетчатки глаза позвоночных), существуют и такие
клетки, которые никогда не генерируют ПД. У них либо очень короткие аксоны,
либо их нет вовсе, и роль выходного элемента выполняет дендрит. Их ВПСП
возникающие в соме, могут электротонически распространяться до окончания аксона
(дендрита), побуждая его к секреции медиатора.
Таким образом, в отличие от
электрических возбуждающие химические синапсы: 1) передают сигнал относительно
медленно; 2) передают сигнал всегда односторонне; 3) имеют достаточно высокую
надежность передачи, которая однако резко падает при некоторых изменениях в
межклеточной среде, особенно при снижении (Са2+); 4) обнаруживают
значительные следовые процессы, что делает их способными суммировать
(интегрировать) последовательные сигналы.
Синапсы тормозного действия. Синоптическим торможением
обозначают влияние пресинаптической нервной клетки, прекращающее или
предотвращающее возбуждение постсинаптической нервной клетки (или иной
клетки—мишени).
В тормозном синапсе происходит
изменение знака действия: пресинаптическое возбуждение (ПД) порождает
постсинаптический тормозный процесс или состояние.
Известны два варианта тормозных
синапсов: электрические (встречающиеся очень редко) и химические (основной
вариант).
Электрический тормозный синапс образуется, например, нервным
окончанием на выходном сегменте маутнеровского нейрона у рыб. Два таких нейрона,
расположенные симметрично в продолговатом мозгу, «командуют» противоположно
направленными изгибами хвоста. Когда один из них возбуждается, другой
заторможен. Отчасти это торможение обеспечивается терминалью аксона
клетки—антагониста (или дополнительной вставочной клетки), формирующей
тормозный электрический синапс. В рассматриваемом синапсе тормозящая терминаль
обвивает выходной сегмент, и вся эта конструкция погружена в глиальную чашечку
(рис. 1.38).
Между терминалью и
постсинаптической клеткой здесь нет плотного соединения или щелевого контакта.
Тормозящее влияние развивается за счет действия внешней петли тока, порождаемой
пресинаптическим ПД. Пресинаптический ПД, видимо, останавливается перед
глиальной чашечкой. При этом часть его тока, проходящего через терминаль, идет
прямо в начальный сегмент аксона маутнеровской клетки и существенно
гиперполяризует его. Выход тока из клетки при этом распределен по ее широкой
сома—дендритной части и не производит там существенной деполяризации (рис.
1.38). Гиперполяризующий ток мгновенно тормозит разряд ПД в начальном сегменте
аксона (триггерной зоне) маутнеровской клетки, но это продолжается лишь во
время действия пресинаптического ПД, т. е. на протяжении нескольких
миллисекунд. Описанное электрическое торможение далее поддерживается тормозным
действием более инертных химических синапсов.
Структура химического синапса тормозного действия (ширина
синаптической щели, наличие пресинаптических везикул) в общем соответствует
таковой для возбуждающих химических синапсов. Существует предположение, что
тормозные пресинаптические окончания всегда снабжены особыми уплощенными
везикулами, однако, видимо, это не является общим правилом.
Рассмотрим физиологию химических
синапсов тормозящего действия, например, тормозный нервно—мышечный синапс рака,
реализующий свое действие с помощью медиатора γ—аминомасляной кислоты
(ГАМК). Общая схема работы этого синапса (роль пресинаптического ПД и Са2+)
совпадает с рассмотренной выше работой синапсов возбуждающего действия. Только
ГАМК,
|
|
|
Рис. 1.38 Работа тормозного электрического синапса на
начальном сегменте маутнеровского нейрона рыбы 1 — нервное окончание, 2
— начальный сегмент аксона маутнеровского нейрона; 3 — глиальные чашечки. Стрелками обозначены
входящие (гиперполяризующие) токи высокой плотности. |
|
|
|
Рис. 1.39
Возбуждающий (А) и тормозный (Б) постсинаптические потенциалы
мышечного волокна рака (ВПСП и ТПСП) при разных величинах МП мышечного
волокна Ер — потенциал реверсии ВПСП и ТПСП; стрелки, направленные
вверх и вниз, обозначают ток, идущий наружу и внутрь соответственно. |
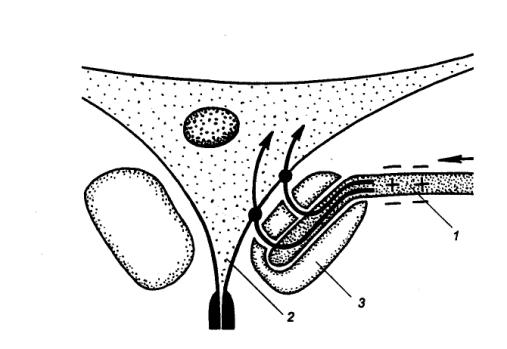
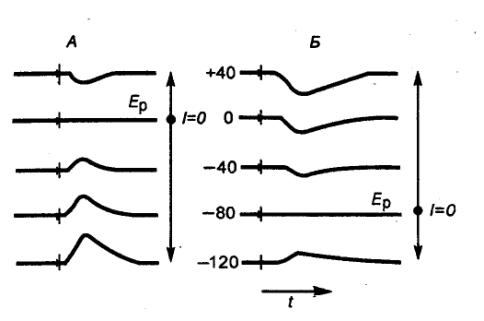
взаимодействуя с рецептором,
открывает в постсинаптической мембране селективные хлорные каналы. Это приводит
к движению ионов Сl— по электрохимическому градиенту.
Так как в данном объекте ЕCl=—80 мВ, то при менее негативном МП (—70...—50) ионы Сl— входят в мышцу и тормозный постсинаптический потенциал
(ТПСП) имеет вид гиперполяризации. При более негативном МП (—90...—100) Сl— выходит из мышечного волокна. При этом ТПСП развивается как
небольшая деполяризация. При МП = —80 мВ движения ионов Сl—, а значит, и ТПСП практически нет (Ep ТПСП) (рис. 1.39).
Торможение за счет хлорного механизма осуществляется
следующим образом. Если МП мышечного волокна низок и ТПСП развивается как
гиперполяризация, то это повышает порог раздражения. Если же МП = —80 мВ и
изменения МП отсутствуют, то торможение все же осуществляется за счет действия
«хлорного шунта», т. е. за счет компенсации входящего (при возбуждении)
натриевого тока идущим через открытые хлорные каналы током ионов Сl—.
В тормозных синапсах, так же как и в возбуждающих, помимо
вызванных имеются спонтанные миниатюрные ТПСП (МТПСП). Их рабочие ТПСП также
формируются из массы МТПСП, возникающих одновременно в ответ на выброс 100—200
квантов ГАМК.
Рассмотрим химические тормозные синапсы в ЦНС
позвоночных. При раздражении афферентов антагонистического нерва в
спинальном мотонейроне (например, у кошки) возникает тормозный
постсинаптический потенциал — ТПСП (рис. 1.40).
Это происходит на 0,5 мс позже, чем появление ВПСП, что
объясняется существованием дополнительного нейрона и синапса в тормозном пути.
Этот специальный тормозный нейрон выбрасывает тормозный медиатор — глицин.
При нормальном исходном МПП (—70 мВ) ТПСП мотонейрона имеет
вид слабой (1—5 мВ) гиперполяризации. Величина этого ТПСП зависит от числа
одновременно активируемых тормозных синапсов. При активации одного синапса ТПСП
(унитарный ТПСП) очень мал (< 220 мкВ). По—видимому, этот ТПСП
соизмерим по амплитуде с МТПСП, и, следовательно, квантовый состав
|
|
|
Рис. 1.40 Постсинаптическое и
пресинаптическое торможение мотонейрона спинного мозга позвоночного А — гиперполяризация начального сегмента аксона петлей тока
ТПСП; Б — форма и полярность
ТПСП на фоне сниженного МП: 1 —
начальный сегмент аксона, 2 —
сома—дендритный комплекс, 3— тормозный синапс на возбуждающей
пресинаптической терминали (о механизме пресинаптического торможения см. в
тексте), 4 — потенциал
действия начального сегмента, 5 — потенциал действия сома—дендритного
комплекса. |
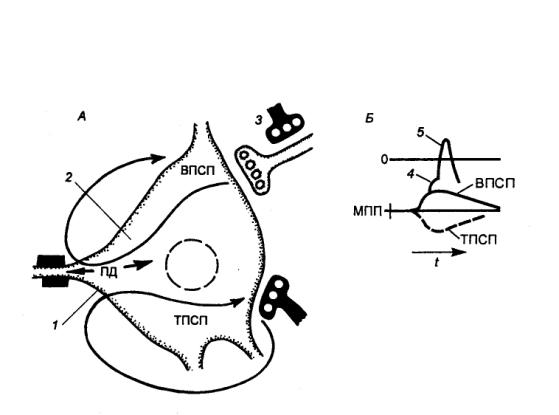
передачи в элементарных тормозных
синапсах здесь невелик (единицы квантов). Если МПП естественно или искусственно
смещается в сторону деполяризации, то амплитуда ТПСП растет, когда же МПП
увеличивается, то ТПСП падает и далее меняет свой знак.
Развитие ТПСП связано со значительным увеличением ионной
проводимости постсинаптической мембраны во время его восходящей (активной)
фазы. В мотонейронах спинного мозга кошки Rвх при этом уменьшается с 1—2 до 0,5
МОм. Спад ТПСП мотонейрона пассивен и определяется перезарядкой мембранной
емкости.
Ионный механизм восходящей фазы ТПСП был определен в опытах с
электрофоретической инъекцией в мотонейрон ионов Сl—. Оказалось, что добавка Сl— в нейрон
сразу же извращает знак ТПСП, а дальнейшее увеличение внутренней концентрации Сl— неуклонно увеличивает амплитуду инвертированного ТПСП.
Эти и другие данные позволяют заключить, что ТПСП в мотонейронах
позвоночных определяются открытием в постсинаптической мембране главным образом
хлорных каналов (по некоторым данным, также и селективных калиевых каналов).
При низком МПП и обычной внутренней концентрации Сl— открытие хлорных каналов приводит к току Сl— внутрь клетки и развитию гиперполяризационного ТПСП.
При высоких МПП и обычной внутриклеточной концентрации Сl— то же открытие хлорных каналов приводит к току Сl— наружу и развитию деполяризационного ТПСП. В мембране
мотонейрона, по—видимому, существует специальный ионный насос, поддерживающий [Сl—] на нормальном уровне.
Тормозный эффект ТПСП здесь (как и в сходном нервно—мышечном синапсе рака)
основывается на двух механизмах. Во—первых, это электротоническое действие
гиперполяризационного ТПСП на триггерную зону (холмик); ТПСП порождает ток,
который входит в холмик и повышает его МП. Во—вторых (и это главное!), имеет
значение действие хлорного шунта на ВПСП. Открытие хлорных каналов как
бы закорачивает ток ВПСП и не дает ему подействовать на триггерную зону нейрона
(холмик).
Хлорный механизм используют не только тормозные синапсы
мотонейронов позвоночных. На этой же основе действуют многие тормозные синапсы
ЦНС, например, тормозные химические синапсы на маутнеровских клетках рыб и
нейронах ЦНС улитки. Но это не единственный механизм постсинаптического
торможения. В некоторых объектах, таких как нейроны легочных моллюсков,
аналогичный тормозный эффект возникает за счет открытия калиевых каналов и
избирательного повышения калиевой проницаемости. В симпатических ганглиях,
видимо, имеются также и синапсы, тормозящие постсинаптическую клетку
посредством повышения МП за счет активации медиатором электрогенного транспорта
ионов.
Рассмотренные выше варианты синаптического торможения могут
быть названы постсинаптическими. Но существует особый вариант
торможения, который называют пресинаптическим.
Этим термином в отличие от постсинаптического торможения
условно называют снижение или выключение активности данной клетки за счет
синаптического торможения оканчивающейся на ней возбуждающей терминали.
Такое торможение подробно описано для нервно—мышечного
прибора ракообразных, моторные терминали которого имеют на себе
аксо—аксональные тормозящие синапсы. В этих синапсах торможение определяется
действием ГАМК, открывающей хлорные каналы моторной терминали. Последний эффект
шунтирует ее натриевые каналы и тем самым снижает амплитуду пресинаптического
ПД. В результате синаптическая передача моторного импульса ослабляется или
исключается. При одиночном импульсе тормозного аксона длительность
пресинаптического торможения составляет 6—7 мс.
Максимальный тормозный эффект получается, если тормозный
импульс достигает аксо—аксонального синапса за несколько миллисекунд до прихода
сюда ПД возбуждающего аксона. Пресинаптическое торможение предупреждает или
заранее исключает развитие постсинаптического возбуждения, но оно не может
повлиять на уже развившееся постсинаптическое возбуждение, причем при
пресинаптическом торможении в постсинаптической клетке не обнаруживается ни
ТПСП, ни изменений электровозбудимости.
Аналогичное Пресинаптическое торможение при раздражении
антагонистических мышечных (и кожных) нервов обнаружено в области терминалей
возбуждающих мотонейронов спинного мозга кошки. Найдено, что эти терминали в
моменты торможения деполяризуются. Торможение (и деполяризация) даже после
одиночного антагонистического залпа весьма длительно (100—200 мс), что,
возможно, связано с повторными активациями тормозящего синапса. Вероятно,
медиатором в этом тормозном аксо—аксональном синапсе является ГАМК. Причины
деполяризации терминалей сложны. Начальная деполяризация здесь может быть
связана с увеличением хлорной проницаемости. Видимо, имеющийся на мембране
терминали градиент ионов Сl— таков, что открытие хлорных каналов
приводит к выходу Сl— из терминали и к ее частичной
деполяризации.
Деполяризация терминали и открытие хлорного шунта снижают ее
ПД и в силу этого уменьшают квантовый состав передачи в возбуждающем синапсе.
Существуют, кроме того, данные о том, что при
пресинаптическом торможении в среде вокруг тормозимой терминали растет
концентрация ионов К+. Они могут выбрасываться из самой терминали,
мотонейрона и других близлежащих клеток. Рост наружной концентрации К+
опять—таки снижает МП терминали и ослабляет ее ПД. Пресинаптическое торможение
представлено в различных отделах ЦНС позвоночных и беспозвоночных.
В научной литературе используют понятие вторичное
торможение, т. е. блокирование ПД постсинаптической клетки из—за избыточной
активности возбуждающих синапсов. Возможность такого пессимального торможения
обнаружил Н. Е. Введенский (1886) в опыте на нервно—мышечном препарате. Этот
блок определяется развивающейся деполяризацией мембран, сопровождаемой
инактивацией их натриевых каналов.
Изменение функции химических
синапсов в ходе ритмической активности.
В химических синапсах при их частой
ритмической активности наблюдается два рода явлений: сначала некоторое облегчение
(усиление), а затем депрессия (ослабление) передачи, т. е. рост, а затем
падение амплитуды постсинаптических потенциалов (ПСП). Оба феномена в основном
определяются изменениями в пресинаптическом механизме передачи.
Работа этого механизма, как уже отмечалось, состоит в
выбросе некоторого количества квантов медиатора в ответ на нервный импульс.
Кванты медиатора — это его более или менее стандартные порции, состоящие из
нескольких тысяч молекул (в нервно—мышечном синапсе, например, из 10 000
молекул Ax).
Каждая такая порция содержится в синаптической везикуле, и ее выброс, видимо,
соответствует опорожнению в синаптическую щель одной везикулы, находящейся на
стартовой позиции вблизи пресинаптической мембраны.
Количество квантов медиатора, высвобождающихся вслед за одним
нервным импульсом (квантовый состав передачи), зависит от двух факторов:
от средней вероятности (р) выброса каждого кванта, готового к
высвобождению (т. е. находящегося на стартовой позиции), и от числа квантов на
стартовых позициях (п). Количество выбрасываемых при одиночной передаче
квантов медиатора т = рп. При стандартности амплитуды
пресинаптического ПД и прочих равных условиях р зависит от наружной
концентрации Са2+ в синаптическом районе.
При развитии ПД нервного окончания через открывающиеся потенциалозависимые
кальциевые каналы в нервное окончание снаружи поступает некоторое количество Са2+.
Это прямо показано в опыте на гигантском синапсе кальмара с помощью экворина
(вещества светящихся медуз), реагирующего высвечиванием на малые дозы Ca2+. При введении экворина в
пресинаптическую терминаль можно зарегистрировать свечение при каждой
синаптической передаче. Поступление Са2+ необходимо для выброса
квантов медиатора. При снижении [Ca2+] снижается и вероятность
выброса. В бескальциевой среде р ≈ 0, выброс квантов медиатора в
ответ на нервный импульс не происходит, однако ионофоретическая подача Са2+
к синапсу мгновенно восстанавливает передачу.
Начальный рост ПСП (облегчение) при ритмической активности,
определяется ростом квантового состава и связано с увеличением р
вследствие нарастания фоновой внутритерминальной концентрации Са2+.
Это нарастание происходит благодаря тому, что при каждой передаче наружный Са2+
поступает в терминаль, и некоторое его количество (след) остается в рабочей
зоне к моменту следующей передачи.
Феномен облегчения особенно отчетлив в синапсах с исходно
низкой вероятностью выброса квантов, например в «резервных» синапсах мозга (и
мышц). Облегчение передачи здесь может продолжаться и после частой ритмической
активности (посттетаническое облегчение, или посттетаническая
потенциация), причем довольно длительно (минуты).
Отчетливое облегчение в этих случаях связано с тем, что р
исходно низка, т. е. далека от насыщения (ртах =
1), и с тем, что при низкой величине р запас готовых к высвобождению
квантов (п) истощается мало, а значит, слаба депрессия, способная
маскировать облегчение.
Депрессия передач (падение ПСП) связана с падением
квантового состава. Она отчетливо выявляется при высоких величинах р, когда с
каждой передачей изымается значительная часть (фракция) запаса п. При
этом т прогрессивно снижается от передачи к передаче, однако не падает
до нуля. Дело в том, что активность нервного окончания и идущее в нем истощение
запаса квантов каким—то образом мобилизуют процесс восполнения запаса. В итоге
достигается равновесие траты и восполнения п, внешне выражающееся в
стабилизации квантового состава передачи на некотором уровне.
Явления облегчения и депрессии при ритмической передаче
имеют особое развитие в некоторых синапсах ЦНС. Здесь они выступают как факторы
синоптической пластичности, причем облегчение участвует в «проторении»
новых путей (в сенситизации — повышении чувствительности к раздражителям
при формировании временных связей), а депрессия участвует в развитии так называемой
габитуации (см. разд. 3.15).
В экспериментах т (квантовый состав ПСП или передачи)
определяют, деля среднюю амплитуду ПСП (ВПСП или ТПСП) на среднюю амплитуду
спонтанных миниатюрных потенциалов в данном синапсе в данный момент времени, т.
е. на среднюю величину постсинаптической электрической реакции, вызываемой
одним квантом медиатора. Существуют и другие, более сложные методы оценки m, п и р.
Общая характеристика синаптических медиаторов. В предыдущих разделах были
рассмотрены механизмы передачи возбуждающего и тормозного сигнала через
некоторые химические синапсы. При этом основное внимание обращалось на
электрические явления в этих синапсах. В данном разделе речь пойдет о химических
характеристиках известных сегодня медиаторов, об их отношении к постсинаптическим
«мишеням», об организации синтеза, хранения, выброса медиаторов из нервных
окончаний, об удалении медиаторов из синаптической щели после осуществления
передачи, а также веществах — специфических блокаторах различных химических
синапсов.
Медиаторы, выявленные к настоящему времени у животных и
человека, составляют довольно разнородную группу веществ. Это моноамины,
ацетилхолин, дофамин, норадреналин, серотонин, гистамин; аминокислоты:
ГАМК, глутамат (глутаминовая кислота), глицин, таурин и др. Все эти вещества
содержат в молекуле положительно заряженный атом азота. Их структурные формулы
показаны на рис. 1.41. К медиаторам относится хорошо известное макроергическое
вещество — АТФ (аденозинтрифосфат). И наконец, большая группа веществ — нейропептидов,
— по—видимому, также может быть отнесена к медиаторам (хотя некоторые из
них играют скорее роль гормонов, «модуляторов» синаптической передачи,
действующих через кровоток). Это вещество (субстанция) Р, метэнкефалин,
лейэнкефалин, эндорфины, нейротензин, АКТГ (кортикотропин), ангиотензин,
окситоцин, вазопрессин, вазоактивный интестинальный пептид, соматостатин,
тиролиберин, бомбезин, холецистокининоподобный пептид, карнозин (табл. 1.4).
В мозгу позвоночных некоторые из этих пептидов участвуют в
передаче информации о потребности организма в питье (ангиотензин), в половой
активности (люлиберин). Субстанция Р играет роль медиатора, который
используется в синапсах нейронов, передающих сигналы боли, а эндорфины и
энкефалины — в синапсах нейронов, осуществляющих блокирование болевых
импульсов.
Низкомолекулярные медиаторы синтезируются в пресинаптических
нейронах и накапливаются в их везикулах. Синтез медиаторов происходит из
соответствующих предшественников и требует энергии. Он протекает в перикарионе,
откуда везикулы быстрым аксотоком перемещаются к нервным окончаниям. Однако в
некоторых случаях (например, в нервно—мышечных синапсах и в синапсах
электрических органов рыб) синтез Ах
и его упаковка в везикулы идут отчасти в самих нервных окончаниях.
|
|
|
Рис. 1.41 Модели структурных формул основных медиаторов |
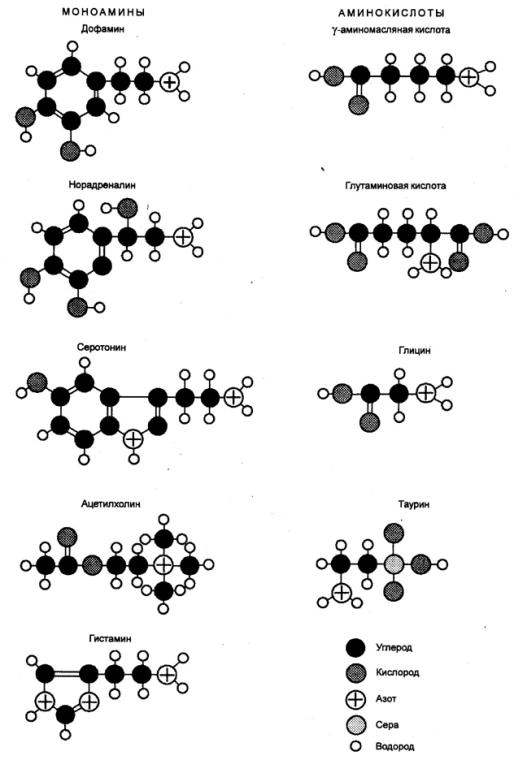
Та
блица 1.4
Некоторые известные и предполагаемые
нейромедиаторы и нейромодуляторы
|
Вещество |
Точки
приложения |
Действие |
Статус |
|
Ацетилхолин |
Скелетные
мышцы позвоночных; нервно—мышечное соединение |
Возбуждающее |
Уст. |
|
Вегетативная
нервная система: преганглионарные
симпатические нейроны; пре— и
постганглионарные парасимпатические нейроны |
« Возбуждающее или тормозное |
« « |
|
|
ЦНС
позвоночных |
Возбуждающее |
« |
|
|
Различные
органы беспозвоночных |
Разное |
« |
|
|
Норадреналин |
Большинство
постганглионарных симпатических нейронов; ЦНС |
Возбуждающее
или тормозное |
« |
|
Глутаминовая
кислота |
ЦНС |
Возбуждающее |
Возм. |
|
ЦНС и
ПНС ракообразных |
« |
Уст. |
|
|
Аспарагиновая
кислота |
Сетчатка
позвоночных |
|
Возм. |
|
у—Аминомасляная
кислота (ГАМК) |
ЦНС |
Тормозное |
Уст. |
|
ЦНС и
ПНС ракообразных |
« |
« |
|
|
Серотонин
(5—гидрокситриптамин) |
ЦНС
позвоночных и беспозвоночных |
|
« |
|
Дофамин |
ЦНС |
|
« |
|
Октопамин |
ЦНС
насекомых |
Возбуждающее
модулирующее |
« |
|
Субстанция
Р |
ЦНС |
Тормозное
модулирующее |
« |
|
Различные
пептиды |
ЦНС
позвоночных и беспозвоночных; кишечник |
Разное |
« |
* Уст. — медиаторная
функция установлена; Возм. — медиаторная функция предполагается.
Образование пептидов—медиаторов (модуляторов) происходит
более сложным путем: сначала в пресинаптической клетке синтезируется полипептид
— прогормон; затем из него через стадию гормона путем последовательного
укорочения цепи аминокислот образуется активный пептид.
Для обозначения синапсов используют терминологию,
указывающую на конкретный медиатор. Так, синапсы, в которых передача
(«действие») осуществляется с помощью ацетилхолина, называются холинергическими.
Таким же образом строятся и обозначения синапсов, действующих с помощью других
медиаторов (норадренергические, ГАМК—ергические, серотонинергические и т. д.)
(от греч. ergon — действие).
Выявление среди массы нервных элементов клеток определенного
действия достаточно трудоемко. Относительно легко выявляются лишь нейроны,
содержащие катехоламины (дофамин, норадреналин) и серотонин, которые при их
обработке формальдегидом и глиоксиловой кислотой образуют продукты,
флуоресцирующие в ультрафиолетовых лучах. Сложным процессом является и
улавливание медиаторов в околоклеточной среде, так как их количества здесь
невелики. Наиболее чувствительными, пригодными для этих целей пока остаются биологические
методы тестирования (например, выявление в жидкостях ацетилхолина по
реакции на него таких высокочувствительных мишеней, как гладкие мышцы легкого
лягушки, сердце лягушки, спинная мышца пиявки).
Если нейрон использует классический
медиатор, то только один, например, ацетилхолин. Это называют «принципом
Дейла». На неклассические медиаторы (АТФ, пептиды и др.) этот принцип не
распространяется. Один нейрон может одновременно вырабатывать ацетилхолин и
пептид, норадреналин и АТФ и т. п.
Выброс всех медиаторов (секреция их
квантов) из нервных окончаний соответствующих нейронов происходит под влиянием
пресинаптического ПД при использовании внешнего Са2+ который входит
в деполяризованную терминаль и действует с помощью белка — кальмодулина,
фосфорилирующего мембранные белки в активной зоне синапса.
Молекулярные мишени медиаторов. Естественно, что большому
количеству различных медиаторов соответствует большое количество
постсинаптических рецепторов, которые называют соответственно ацетилхолинорецепторами,
или просто холинорецепторами, адренорецепторами, серотонинорецепторами,
ГАМК—рецепторами и т. д. Эти рецепторы представляют собой белковые или
более сложные макромолекулы (гликопротеины, липопротеины), содержащие участки,
которые комплементарны к соответствующим медиаторам и вместе с тем способны так
или иначе контролировать состояние мембраны и субмембранных структур
постсинаптической клетки.
Считается, что направленность
(вектор) синаптического действия определяется не природой медиатора
(возбуждающий или тормозящий), а характером рецептора. Выше уже было показано,
что в холинорецепторах скелетной мышцы позвоночного при взаимодействии с Ах
открывается катионный канал, пропускающий ионы Na+ в клетку. Это создает не только
местную деполяризацию (ПКП), но и метаболические эффекты. Здесь же подключаются
ионы Са2+, высвобождаемые из внутриклеточных депо и действующие на
метаболические системы клетки через кальмодулин. Все это происходит в синапсе,
где реализуется только возбуждение. Но сходная цепь событий имеет место в
тормозящих синаптических образованиях. При взаимодействии ГАМК с
ГАМК—рецепторами в этих рецепторах открываются каналы для ионов Сl—, что приводит к развитию ТПСП, а вероятно, и
внутриклеточных процессов, контролируемых хлором.
Некоторые рецепторы медиаторов (в
частности, адренорецепторы и рецепторы многих нейропептидов) связаны не с
ионными каналами, а с мембранной макромолекулой, например ферментом аденилатциклазой.
Молекула аденилатциклазы, однократно активируемая медиатором, катализирует
превращение множества молекул цитозольного АТФ в цАМФ (усилительный механизм).
цАМФ, диффундируя в клетку, активирует многие ферменты (их называют
цАМФ—зависимыми), в частности протеинкиназы, и таким образом стимулирует
клеточный метаболизм.
ЦАМФ называют вторичным посредником,
или мессенджером, между пресинаптическим ПД и метаболическим ответом
постсинаптической клетки: он разрушается ферментом фосфодиэстеразой.
В естественных условиях
обнаруживается довольно сложное взаимодействие между системой Са2+—кальмодулин
и аденилатциклазной системой. Например, показано, что Са2+
поступающий в нервную клетку (моллюска), через кальмодулин активирует
фосфодиэстеразу и таким образом снижает уровень цАМФ в клетке. Но цАМФ
необходим для поддержания открытого состояния Са2+ —каналов. Таким
образом, снижение уровня цАМФ закрывает Са—каналы, прекращая поступление Са2+
в клетку (пример саморегуляции [Са2+вн).
Помимо рассмотренной аденилатциклазной системы описаны
аналогичные ей гуанилатциклазная система, система фосфолипазы С и др.
Фермент гуанилатциклаза, активируясь под влиянием
рецепторов некоторых медиаторов, катализирует превращение гуанозинтрифосфата
(ГТФ) в циклический гуанозинмонофосфат (цГМФ), играющий роль мессенджера,
который передает сигнал от мембраны к внутриклеточным ферментам.
Мембранный фермент фосфолипаза С, активируемый под
влиянием, например, так называемого М—холинорецептора (см. ниже), катализирует
образование из мембранных липидов (фосфоглицеридов, фосфоинозитидов)
диацилглицерола и инозитолтрифосфата (ИТФ). Эти вещества также являются
мессенджерами, влияющими на клеточный метаболизм. Кроме того, ИТФ провоцирует
выброс Са2+ из внутриклеточных депо и через это — открытие особых кальцийзависимых
калиевых каналов в мембране постсинаптической клетки.
Постсинаптические (а также и найденные на некоторых нервных
окончаниях пресинаптические) рецепторы высокочувствительны к соответствующим
медиаторам. Например, холинорецепторы реагируют на появление Ах в концентрации
10—8 моль/л, хотя рабочая концентрация Ах в синаптической щели около
холинорецептора достигает 10—4—10—2 моль/л. Однако
чрезмерно длительное действие медиатора, в частности ацетилхолина, на
соответствующие рецепторы приводит к снижению чувствительности этих рецепторов
к медиатору, что называют десенситизацией рецепторов. Механизм
десенситизации до сих пор не выяснен, но известно, что ее развитию способствует
избыток в среде ионов Са2+.
Ранее предполагали, что каждому пресинаптическому медиатору
соответствует специфическая реакция постсинаптической клетки — возбуждение или
торможение в той или иной форме. Однако это не так: одному медиатору чаще всего
соответствует не один, а множество различных рецепторов. Например, ацетилхолин
в нервно—мышечных синапсах скелетных мышц у позвоночных действует на так
называемые Н—холинорецепторы (чувствительные к никотину), которые
открывают широкие каналы для Na+ (и К+), что порождает
ВПСП (ПКП). В ваго—сердечных синапсах этот же ацетилхолин действует на М—холинорцепторы
(чувствительные к мускарину), открывающие под его действием селективные каналы
для К+ в связи с чем здесь генерируются ТПСП.
Показано, что в нервной системе моллюсков имеются
холинорецепторы нескольких типов: открывающие каналы для Na+ (возбуждающие), открывающие каналы
для К+ (тормозные) и открывающие каналы для Сl— (тормозные). По—видимому, возможны разные комбинации
рецепторов и каналов (или иных рабочих механизмов мембраны, например
аденилатциклазы, гуанилатциклазы и т. п.).
Таким образом, характер пресинаптического медиатора сам по
себе не предопределяет характера постсинаптического эффекта. Последний задается
свойствами постсинаптических механизмов, хотя у некоторых медиаторов (например,
ГАМК) пока обнаружены лишь эффекты одного знака (тормозные).
Отработавшие в синапсе медиаторы подвергаются инактивации
тем или иным путем. Ацетилхолин, например, разрушается (гидролизуется)
ферментом ацетил—холинестеразой, которая присутствует в синаптической щели и
встроена в постсинаптическую мембрану. Образовавшиеся при этом гидролизе
физиологически неактивные холин и ацетат далее всасываются нервным окончанием.
Норадреналин расщепляется моноаминоксидазой, а также
катехолметил—0—трансферазой. Кроме того, в неизменном состоянии он подвергается
обратному всасыванию.
Т а б л
и ц а 1.5
Некоторые
вещества, блокирующие синаптические функции
|
Синапсы, |
Блокаторы
секреции медиаторов |
Блокаторы
рецепторов медиаторов |
Блокаторы
систем, разрушающих медиаторы. |
Примечания |
|
Нервно—мышечный
холинергический с Н—холинорецепторами |
Ботулиновый
токсин; Mg2+ |
D—тубокурарин
(кураре), α—бунгаротоксин |
Эзерин,
фосфорорганиче—ские соединения (ФОС) |
— |
|
Автономный
(холинергический) с М—холинрецепторами |
Тоже |
Атропин |
Тоже |
|
|
Тормозящий
синапс в ЦНС (глицинергический) |
Mg2+ |
Стрихнин |
|
Разрушение
медиатора заменено обратным всасыванием |
|
Тормозящий
синапс (ГАМК—ергический) |
Mg2+ |
Бикукулин,
пикротоксин, пенициллин |
|
Тоже |
Для многих медиаторов (аминокислот,
пептидов) обратное всасывание (обратный захват, «аптейк» (от англ. uptake — всасывание, впитывание)) является
главным способом прекращения их действия.
Химические синапсы могут изменять
свое состояние под влиянием некоторых гормонов, циркулирующих в крови, и
веществ, высвобождаемых постсинаптическими клетками (обратная связь). Все эти
вещества называют модуляторами синапсов. К локальным постсинаптическим
модуляторам синаптической функции предположительно относят, например, простагландины
(ненасыщенные оксикарболовые жирные кислоты), обладающие высокой
физиологической активностью, но быстро инактивирующиеся и потому действующие
локально. Простагландины, высвобождаемые из клеток, влияют на многие звенья
синаптического процесса, например на секрецию медиатора, работу аденилатциклаз
и т. д.
В настоящее время известно довольно
много фармакологических веществ, способных модифицировать работу
химических синапсов; среди них есть блокаторы нейросекреции, рецепторов,
систем, разрушающих медиатор (табл. 1.5).
Существуют также специфические
блокаторы хеморецепторных каналов. Многие из показанных в табл. 1.5 веществ
используют в качестве лечебных средств (атропин, эзерин) или токсических
агентов для борьбы с вредителями в сельском хозяйстве (ФОС). Кроме того, все
эти вещества применяют в качестве «химических инструментов» при исследованиях
синапсов. В частности, меченый змеиный яд — α—бунгаротоксин — используют
для выявления холинорецепторов, а также для выделения комплекса
яд—холинорецептор из мембраны для последующего изучения изолированных
холинорецепторов.
Трофические влияния, передаваемые через
синапсы. Помимо
передачи возбуждающих или тормозных сигналов, которые имеют функциональное
значение, синапсы обеспечивают трофические (т. е. затрагивающие рост и
дифференцировку) взаимодействия контактирующих клеток, реализуемые с помощью
трофических факторов белковой природы (вероятно, аккумулируемых в «темных»
везикулах).
Трофические факторы обеспечивают метаболическое поддержание
необходимой структуры и свойств этих клеток. Двусторонние трофические
взаимодействия предполагают во всех синапсах, но изучены главным образом ортодромные
трофические влияния в нервно—мышечных синапсах позвоночных.
Наиболее отчетливые результаты в этом отношении получены на
так называемых тонических нейромоторных единицах амфибий. У тонических
единиц каждое мышечное волокно имеет множество холинергических синапсов от
ветвей двух—трех малых (у) мотонейронов. Холинорецепторы у них сосредоточены в
синаптических районах, а мышечная мембрана лишена электровозбудимости, в ней
нет потенциалозависимых натриевых каналов, и, соответственно, не возникают
проводящиеся ПД. Сокращения тонического волокна запускаются прямо от ВПСП,
которые из—за множественности синапса электротонически действуют на все
волокно.
Денервация тонических волокон (перерезка γ—аксонов)
через некоторое время приводит к изменению их свойств. В денервированных
волокнах холинорецепторы оккупируют всю поверхность их плазматической мембраны.
Кроме того, в этой мембране появляются натриевые каналы, а следовательно,
электровозбудимость. Последнее свидетельствует о том, что синтез макромолекул —
натриевых каналов — здесь имеет место лишь при денервации. В нормальных
условиях он репрессирован. Реиннервация (γ—аксонами) восстанавливает
исходные свойства тонических волокон.
Анализ трофических явлений с оценкой скорости развития процессов
и применением блокаторов быстрого аксотока (колхицин, винбластин) привел к
заключению, что трофические факторы, регулирующие синтез и распределение
холинорецепторов по мышечной мембране, передаются из перикариона
γ—мотонейрона с быстрым аксотоком, трофические факторы, запрещающие синтез
натриевых каналов, — с медленным аксотоком.
Денервация приводит к изменению свойств скелетных мышечных
волокон и у млекопитающих: к замедлению быстрых мышц и ускорению медленных, т. е.
к потере дифференцировки, достигнутой в онтогенезе.
Эффекты денервации мышц в какой—то мере имитируются
действием токсинов, нарушающих синаптическую передачу, — ботулинового и
дифтерийного токсинов.
Известны косвенные данные и о существовании антидромных
трофических влияний в нейромоторных синапсах (дегенерация мотонейронов при
потере их связи с мышечными клетками). Таким образом, относительно медленные и
мало заметные трофические влияния через синапсы, идущие параллельно с
осуществлением сигнальных функций, важны для поддержания (и развития) структур
контактирующих клеток, а значит, и для поддержания и развития нормальной
сигнальной функции синапсов.
1.1.8. Нервные сети и основные
законы их функционирования
Нервная система человека и животных может быть представлена
как система нейронных цепочек, передающих возбуждающие и тормозные сигналы {нервная
сеть).
Существуют значительные количественные различия нервных
сетей у разных видов позвоночных и беспозвоночных. Так, у человека нервная
система включает 1010 элементов, у примитивных позвоночных — около
104 нейронов (их нервная система называется малонейронной). Однако в
строении и функционировании всех нервных систем имеются общие черты.
В нервной системе позвоночных и
беспозвоночных можно выделить следующие категории нейронов: 1) чувствительные
(сенсорные) нейроны, формирующие чувствительные нервные окончания — рецепторы;
2) двигательные, возбуждающие (а у беспозвоночных также и тормозящие)
мускулатуру нейроны;
сюда же можно отнести нейроны, запускающие
работу электрических органов (рыб) и желез; все эти нейроны называют эффекторными;
3) вставочные нейроны, передающие сигналы от сенсорных к эффекторным
нервным клеткам.
Особую категорию составляют так
называемые командные вставочные клетки, которые благодаря связям со
множеством эффекторных нейронов запускают более или менее сложные поведенческие
акты.
Все эти клетки наиболее подробно
изучены в малонейронной нервной системе моллюсков (например, у аплизии).
Там осуществлена идентификация многих крупных элементов, которые имеют
стандартное положение в ганглиях и стандартные функции у всех особей.
Предполагают, что такую же жесткую регламентацию структуры и свойств могут
иметь и некоторые нейроны высших животных.
Во всех изученных нервных системах (сетях)
обнаружены дивергенция путей, передающих те или иные сигналы; конвергенция
путей, передающих информацию в высшие, а также в исполнительные центры; различные
варианты тормозных связей между элементами нервных цепочек.
Дивергенция и конвергенция путей. Дивергенция пути — это
контактирование одного нейрона со множеством нейронов более высоких порядков
(рис. 1.42). Так, у позвоночных существует разделение аксона чувствительного
нейрона, входящего в спинной мозг, на множество веточек (коллатералей),
которые направляются к разным сегментам спинного мозга и в головной мозг, где
происходит передача сигнала на вставочные и далее — на моторные нервные клетки.
Дивергенция пути сигнала наблюдается
и у вставочных, например командных» клеток, а также выходных нервных клеток
(мотонейронов и других эффекторных нейронов). Так, у человека большой
мотонейрон (группы А) иннервирует, т. е. возбуждает десятки мышечных
волокон (во внешних глазных мышцах) и даже тысячи (в мышцах конечностей).
Дивергенция пути обеспечивает расширение
сферы действия сигнала. Это называют иррадиацией возбуждения (или
торможения).
|
|
|
Рис. 1.42 Дивергенция
(А) и конвергенция (Б) путей в нервной системе. Показано на примере сенсорных аксонов
и нейронов ЦНС позвоночного; аналогичные отношения наблюдаются во всех типах
нервной системы. |
Конвергенция — это схождение многих нервных путей
к одним и тем же нейронам (рис. 1.42).
Например, у позвоночных на каждом мотонейроне
спинного мозга и ствола головного мозга образуют синаптические окончания тысячи
сенсорных, а также возбуждающих и тормозных вставочных нейронов разных уровней.
Мощная конвергенция обнаруживается и на нейронах ретикулярной формации ствола
мозга, на многих корковых нейронах у позвоночных и, видимо, на командных
нейронах.
Конвергенция многих нервных путей к
одному нейрону делает этот нейрон интегратором, соответствующих сигналов.
Его состояние, т. е. импульсация или «молчание» в каждый данный момент
определяются алгебраическим сложением массы возбуждающих и тормозных входов,
иными словами, интегралом всех его ВПСП и ТПСП. Такое сложение ПСП называют пространственной,
или одновременной, суммацией. При этом нейрон—интегратор называют общим
путем для конвергирующих на него нервных сигналов, а если речь идет о
мотонейроне, т. е. конечном звене нервного пути к мускулатуре, говорят об общем
конечном пути.
Наличие конвергенции множества путей, т. е. нервных цепочек,
на одной группе мотонейронов лежит в основе феноменов пространственного
облегчения и окклюзии.
Пространственное облегчение — это превышение эффекта
одновременного действия двух относительно слабых афферентных возбуждающих
входов в ЦНС над суммой их раздельных эффектов. Феномен объясняется суммацией
ВПСП до КУД в группе мотонейронов, имеющих подпороговые ВПСП при раздельной
активации входов.
Окклюзия — это явление, противоположное пространственному облегчению.
Здесь два сильных (т. е. реализуемых большим числом элементов) афферентных
входа вместе возбуждают группу мотонейронов, меньшую той, которая образуется
при арифметическом сложении ответов групп мотонейронов, возбуждаемых от этих
входов, когда они действуют порознь.
Причина окклюзии состоит в том, что эти афферентные входы в
силу конвергенции отчасти адресуются к одним и тем же мотонейронам, и каждый
может создать в них такое же сверхпороговое возбуждение, как и оба входа
вместе.
Использование торможения в нервных сетях. Рассмотрим основные направления
тормозных действий в нервных сетях: реципрокное торможение, возвратное
торможение, латеральное торможение и прямое взаимное торможение.
Реципрокное торможение — это взаимное (сопряженное) торможение центров
антагонистических рефлексов, обеспечивающее координацию этих рефлексов.
Классический пример реципрокного торможения — это торможение
мотонейронов мышц—антагонистов у позвоночных (рис. 1.43). Торможение
осуществляется с помощью специальных тормозных вставочных нейронов. При
активации путей, возбуждающих, например, мотонейроны мышц—сгибателей, мотонейроны
мышц—разгибателей тормозятся импульсами вставочных клеток.
|
|
|
Рис. 1.43 Реципрокное торможение в спинном мозгу
позвоночных (А) и в нервной системе ракообразных (Б) А — реципрокное торможение мотонейров мышцы—разгибателя (осуществляется
с помощью тормозного интернейрона); Б
— реципрокное торможение мышцы—открывателя клешни рака при
раздражении, возбуждающем закрыватель клешни (торможение направлено не на
мотонейрон, а прямо на мышцу); 1 —
мышца—разгибатель, 2 —
мотонейрон разгибателя, 3 — тормозный интернейрон, 4 — сенсорный нейрон, 5 — возбуждающий интернейрон, 6 — мотонейрон сгибателя, 7 —
мышца—сгибатель, в — тормозный эффекторный нейрон, 9 — мышца—открыватель, 10
— мотонейрон. |
|
|
|
Рис. 1.44 Возвратное
(А), латеральное (Б) и прямое взаимное торможение (В) А — в спинном мозгу позвоночных; Б —
в сенсорном пути; В —
предполагаемое у командных клеток (моллюсков); в, т. — возбуждающее и
тормозное действие; стрелками
показано направление нервного импульса. |
|
|
|
Рис.
1.45 Нервная цепочка, поддерживающая
циркуляцию возбуждения (в) и постоянную выходную импульсацию Начало
активности цепочки задается возбуждающим афферентным синапсом (1), конец — утомлением или внешним
тормозным влиянием (т). |
Аналогичное
по смыслу торможение, но направленное прямо на мышцы, наблюдается у
ракообразных.
Возвратное торможение — это торможение нейронов собственными импульсами,
поступающими по возвратным коллатералям к тормозным клеткам.
Возвратное постсинаптическое торможение хорошо изучено в
мотонейронах спинного мозга позвоночных (рис. 1.44). Аксоны этих клеток отдают
возвратные коллатерали в мозг к тормозным вставочным нейронам Реншоу, которые
образуют синаптические контакты на соседних или на этих же мотонейронах.
Торможение десинхронизирует деятельность отдельных α—мотонейронов и
обеспечивает ограничение их ритма разрядов, что важно для нормальной работы
двигательного аппарата.
Характерно, что как и в мионевральном синапсе, в контакте на
клетке Реншоу медиатором служит Ах.
Важную роль выполняет возвратное торможение и в других нервных сетях.
Латеральное торможение — это торможение элементов соседних нервных цепочек в
конкурирующих сенсорных каналах связи (рис. 1.44).
Латеральное торможение, видимо, также осуществляется с
помощью тормозных вставочных клеток. Такое торможение четко показано у
мечехвостов (класс морских членистоногих) в сенсорных цепочках, идущих от
фасеточного глаза к ЦНС. Оно наблюдается у соседних элементов сетчатки
позвоночных, а также в их зрительных, слуховых и других сенсорных центрах.
Во всех случаях латеральное торможение обеспечивает
контраст, т. е. выделение существенных сигналов из фона.
Прямым взаимным торможением (рис. 1.44) можно назвать тормозное
взаимодействие двух (или большего числа) командных нейронов, осуществляющееся
без специальных вставочных клеток.
Такое торможение предполагается у командных клеток L—10 и интернейрона II у
моллюска аплизии. Прямое взаимное торможение в паре клеток делает эту пару
склонной функционировать по принципу «или — или». Иначе говоря, такая
«метастабильная» сеть разрешает работу либо клетке L—10, либо клетке II в
силу того, что активная клетка прямо тормозит конкурента, чем освобождает себя
от торможения с его стороны.
Предполагают, что подобные отношения существуют и между
командными нейронами мозга высших животных и человека, обеспечивающими
поведенческие и эмоциональные установки по принципу доминанты (см. разд.
3.2.5).
Самовозбуждающиеся
нервные цепи. Некоторые
данные свидетельствуют о том, что в мозгу животных и человека существуют
самовозбуждающиеся цепочки нейронов, т. е. такие замкнутые цепочки, в которых
нейроны соединены синапсами возбуждающего действия (рис. 1.45). Возникнув в
ответ на внешний сигнал, возбуждение в такой цепочке циркулирует, иначе говоря,
реверберирует (от лат. reverberare — отраясать, отбрасывать), до тех
пор, пока или какой—либо внешний тормоз не выключит одно из звеньев цепи, или в
ней не наступит утомление. Выходные пути от такой цепочки (ответвляющиеся по
коллатералям аксонов нервных клеток — участников цепи) во время, работы
передают равномерный поток импульсов, создающий ту или иную настройку в нервных
клетках—мишенях.
Таким образом, самовозбуждающаяся
цепочка, пока она работает, как бы «помнит» тот краткий сигнал, который включил
в ней циркуляцию (реверберацию) импульсов. Считают, что это возможный
механизм (или один из механизмов) краткосрочной памяти.
1.1.9. Рефлексы и рефлекторные дуги
Рефлексом принято называть «машинообразный»
ответ организма на какое—либо воздействие, который реализуется в форме
последовательного возбуждения цепочки элементов, составляющих так называемую рефлекторную
дугу. В рефлекторной дуге различают рецептор (сенсор), афферентный путь,
центральное звено, эфферентный путь, эффектор (рабочий орган).
Пример рефлекса — отдергивание
конечности при нанесении болевого раздражения. Такой ответ можно наблюдать в
неосложненной форме у спинальной (декапитированной) лягушки. Рефлекторная дуга
этого рефлекса включает рецепторы кожи, чувствительные нейроны (с телами,
лежащими в спинальных ганглиях), вставочные нейроны, мотонейроны спинного мозга
и иннервируемые ими мышцы—сгибатели (эффекторы).
Рефлекторную дугу для простоты изображают в виде
цепочки одиночных элементов или ряда таких параллельных цепочек (рис. 1.46). Памятуя о наличии дивергенции
и конвергенции в нервной системе, необходимо заметить, что такая рефлекторная
дуга является искусственной, условно выделенной частью нервной системы (нервной
сети). Однако это «выделение» целесообразно, так как оно помогает сосредоточить
внимание на важнейших компонентах нервного механизма, реализующего данный ответ
на внешнее воздействие.
Описано и изучено множество рефлексов
у различных животных и человека. Все эти рефлексы по ряду моментов могут быть
разделены на группы.
|
|
|
Рис. 1.46 Рефлекторные дуги кожного (А) и мышечного
(коленного) (Б) рефлексов млекопитающих А — трехнейронная, дисинаптическая дуга кожного рефлекса; Б — двухнейронная,
моносинаптическая дуга коленного рефлекса: 1 — кожные рецепторы, 2
— мышечные веретена (рецепторы растяжения мышцы, реагирующие на удар
по подколенному сухожилию). |
Классификация рефлексов. Возможно разделение рефлексов по
рецепторам. Различают рефлексы с рецепторов кожи — кожные, сетчатки
глаз — зрительные, с рецепторов улитки — слуховые, с обонятельных
рецепторов — обонятельные. Всю эту группу называют экстероцептивными
рефлексами; рефлексы с рецепторов внутренних органов называют интероцептивными;
рефлексы с рецепторов мышц, сухожилий и суставов — проприоцептивными.
Возможно разделение рефлексов по
эффекторам. Различают рефлексы двигательные (реализуемые мышцами
скелета), сердечные (проявляющиеся в изменениях работы мышцы сердца), сосудистые
(проявляющиеся в изменении тонуса гладких мышц кровеносных сосудов), секреторные
(реализуемые в развитии или изменении секреции желез) и т. п.
Возможно разделение рефлексов по
локализации и характеру их центрального звена. Центральное звено — это
та часть ЦНС, которая необходима и достаточна для данного рефлекса.
Приведенный выше пример рефлекса с
кожи на мышцы сгибателя лапки лягушки реализуется спинным мозгом и называется спинномозговым
(спинальным). Он имеет трехнейронную и, соответственно, дисинаптическую
рефлекторную дугу (здесь считают только центральные синапсы). У некоторых
рефлексов ствола головного мозга в дуге может быть четыре—пять нейронов (три и
четыре центральных синапса соответственно). Все рефлексы, у которых число
синапсов в ЦНС больше единицы, называют полисинаптическими.
Однако существуют и моносинаптические
рефлексы, реализуемые двухнейронной рефлекторной дугой. Пример такого
рефлекса — спинномозговой коленный рефлекс млекопитающих животных и человека.
Этот рефлекс возникает при сильном ударе по сухожилию четырехглавой мышцы бедра
под коленом. При этом прогибающееся сухожилие производит рывок (растяжение)
мышцы, на что мышца отвечает кратким сокращением (быстрое и краткое разгибание
в коленном суставе). Рефлекторная дуга этого рефлекса представлена рецепторами
растяжения четырехглавой мышцы (чувствительные нервные окончания мышечных
веретен), чувствительным путем — отростками клеток спинального ганглия,
крупными мотонейронами спинного мозга с их аксонами и четырехглавой мышцей (см.
рис. 1.46).
Надо отметить, что рецепторы
растяжения, дающие начало этому рефлексу, расположены на так называемых внутриверетенных
(интрафузальных) мышечных волокнах, причем на их средних, лишенных
сократимости, но легко растяжимых частях, содержащих ядра (ядерных сумках).
Вместе с тем эти же интрафузальные мышечные волокна на своих концах имеют
моторную иннервацию из малых γ—мотонейронов. Импульсы γ—мотонейронов
могут возбуждать и таким образом приводить в сокращенное состояние полярные
зоны интрафузальных мышечных волокон, т. е. напрягать ядерную сумку и делать
более чувствительными ее рецепторы. Таким образом, порог возникновения
коленного рефлекса и его сила могут регулироваться влияниями из ЦНС через
γ—мотонейроны.
При постоянном растяжении
мышцы—разгибателя колена, например, под тяжестью тела, стремящейся согнуть
колено, описанный рефлекс имеет тонический (т. е. постоянный) характер. При
этом сокращение мышцы как бы разгружает рецептор растяжения, «включенный»
параллельно, что снижает рефлекс. Но даже небольшое ослабление мышцы сразу же
усиливает нагрузку на рецептор и возвращает необходимую силу рефлекса. Таким
образом, в этом случае работает рефлекторное кольцо: рецептор →
ЦНС → эффектор → рецептор → ... Подобные отношения в естественных условиях
довольно часты.
«Укороченным»
вариантом коленного рефлекса (и других рефлексов растяжения) является так
называемый Н—рефлекс мышцы (аш—рефлекс), возникающий при пороговом
одиночном электрическом раздражении ее проприоцептивных афферентных волокон
(группа Ia).
Так как эти волокна имеют более низкий порог раздражения, чем моторные (α), то реакция мышцы в этом случае
определяется только моносинаптическим рефлексом, в рефлекторной дуге которого
«обойдено» собственно рецепторное звено. Но если сила раздражения увеличивается
и раздражение становится эффективным для α—моторных волокон, то к Н—рефлексу
примешивается более быстрый ответ мышцы на раздражение ее моторных нервных
волокон. Так как рефлекторная дуга коленного рефлекса начинается и заканчивается
в одной и той же мышце, этот рефлекс называют собственным рефлексом мышцы
(миостатическим рефлексом). Все рефлексы, кроме того, разделяются по их биологической
значимости: на оборонительные, или защитные (пример —
отдергивание конечности при болевом раздражении); пищедобывательные и пищеварительные;
сексуальные; родительские и исследовательские. Простейший пример
исследовательского (ориентировочного) рефлекса — поворот головы и ушей
животного к источнику нового звука.
Наконец, рефлексы разделяются на врожденные (безусловные)
и приобретенные (условные). Последние возникают в процессе обучения в
результате формирования новых рефлекторных дуг на основе временных связей между
нервными клетками (см. гл. 3).
Общие свойства рефлексов. Проведение сигнала по классической рефлекторной
дуге, например, защитного кожного или собственного рефлекса мышцы осуществляется
в одну сторону (от рецептора к центру, а от центра к эффектору), что
задается свойствами химических синапсов, хотя и не исключены противоположно направленные
сигналы по возвратным коллатералям, а также управляющие импульсы из ЦНС к
рецепторам.
На развитие рефлекса затрачивается некоторое время,
называемое латентным периодом рефлекса, или временем рефлекса. Время
рефлекса (tреф) складывается
из ряда моментов: из латентного периода возбуждения рецептора (tрец),
времени проведения ПД по афферентному пути (tаф)» центрального
времени (tц), времени проведения ПД по эфферентному пути (tэф) и латентного периода ответа эффектора, например
мышцы (tм):
tреф = tрец + tаф + tэф +
tц + tм
В моносинаптических рефлексах типа коленного у человека tpеф измеряется долями секунды, большую
часть tреф здесь составляют tаф , tэф и tм. В этих рефлексах tц не превышает 1,2 мс и в основном определяется
синаптической задержкой (0,7 мс), так как при одновременной активации массы
рецепторов и затем афферентов ВПСП в мотонейронах имеют сверхпороговую
величину.
В полисинаптических рефлексах типа защитных при раздражении
кожи время рефлекса больше. При умеренных раздражениях оно может измеряться
секундами. Однако это замедление ответа определяется не столько числом синапсов
в рефлекторной дуге, сколько тем, что при умеренных раздражениях кожи
активируется небольшое число рецепторов, и их импульсы поначалу вызывают лишь
пороговые ВПСП в соответствующих вставочных нейронах спинного мозга. При этом
требуется некоторое время на то, чтобы в результате суммации последовательных
ВПСП здесь был достигнут порог генерации ПД.
|
|
|
Рис. 1.47 Последействие спинномозгового рефлекса и один из
механизмов этого феномена а — стимул, например, электрический удар по рецепторам кожи
(указан стрелкой), б —
синхронный одиночный залп афферентных импульсов, в — типичный ответ
интернейронов (длительный ВПСП, серия ПД), порождающий соответствующую
реакцию мотонейронов, г —
механический ответ мышцы с последействием. |
Следует иметь в виду, что при одиночном раздражении одного
рецептора кожи или мышцы и, соответственно, одного афферентного нейрона спинномозговой
рефлекс, как правило, отсутствует. Известно, что синапс от одного афферентного
волокна Iа
(унитарный афферентный вход) на спинномозговом мотонейроне у позвоночных имеет
низкий квантовый состав и, значит, ВПСП при этом является подпороговым.
Таким образом, для реализации спинномозгового рефлекса
необходимы либо одновременное раздражение многих рецепторов, обеспечивающее
пространственную суммацию ВПСП от конвергирующих входов (как при коленном
рефлексе), либо, если раздражаемая группа рецепторов мала, длительное
раздражение, обеспечивающее суммацию последовательных ВПСП (как в случае
рефлекса с рецептора кожи).
При этом важно следующее правило: при равных афферентных
входах (потоках возбуждающих сенсорных сигналов) возбудимость у мелких мотонейронов
выше, чем у крупных. Это объясняется тем, что чем мельче мотонейрон, тем выше
его входное сопротивление электрическому току и тем больше амплитуда ВПСП,
порождаемого током активируемых постсинаптических рецепторов. По той же причине
при постепенном усилении афферентного потока активизируются сначала мелкие, а
затем крупные мотонейроны. Тормозные входы, наоборот, более эффективны в
крупных мотонейронах, так как относительно слабые ВПСП легче шунтируются
активным тормозным входом.
В высших отделах мозга, связанных с формированием ощущения,
даже единичные активации одиночных кожных рецепторов, не вызывающие спинальных
рефлексов, могут быть восприняты. Это объясняется, видимо, тем, что у
восходящих коллатералей сенсорных нейронов терминали имеют более высокий
квантовый состав передачи, а вставочные нейроны восходящих путей мелки,
обнаруживают большой и длительный ВПСП, который порождает не одиночный ПД, а
целую серию ПД, направляемых в высшие инстанции.
При усилении раздражения рецепторов кожи время защитного
сгибательного рефлекса укорачивается. Это происходит из—за роста частоты
сигналов (последовательной суммации) и увеличения числа активных рецепторов
(пространственной суммации в центрах).
В случае условных рефлексов, реализуемых с участием высших
центров, их время может быть удлинено (и сильно!) за счет срабатывания
специального тормозного механизма в центрах (см. разд. 3.14.4).
В центральной части рефлекторной дуги ритм входных
(афферентных) сигналов, как правило, трансформируется в иной ритм выходных сигналов.
Это связано и с феноменами последовательной суммации ПСП, и с другими
причинами, например с явлениями возвратного торможения мотонейронов через
клетки Реншоу у позвоночных.
|
|
|
Рис. 1.48 Постактивационная (посттетаническая) потенциация
в моносинаптической дуге спинного мозга позвоночного А — схема опыта, Б —
рефлекторные синхронные разряды мотонейронов (составные ПД вентрального
корешка) в ответ на редкие раздражения дорсального корешка. Амплитуда этого
ПД пропорциональна числу активируемых мотонейронов. После частого раздражения
— тетанизации (начало и конец обозначены стрелками) — амплитуда ответов на
продолжающиеся редкие раздражения значительное время резко повышена. |
Сила рефлекторного ответа в конечном счете определяется
числом активированных эффекторных нейронов (например, мотонейронов) и
частотой их сигналов.
Сила рефлекса, как правило, растет с усилением раздражения
рецепторов. Пределом этого роста является вовлечение в ответ мотонейронов в
максимальном ритме, хотя предел обычно не достигается в связи с подключением
других рецепторов (болевых) и возникновением тормозных влияний.
Полисинаптическим рефлексам свойственно последействие
(рис. 1.47), т. е. продолжение ответа некоторое время после того, как внешнее
раздражение прекращено. Последействие не связано с продолжающейся импульсацией
рецепторов, так как оно возникает и при кратком электрическом раздражении
центральных концов перерезанных афферентных волокон.
В основе последействия полисинаптического рефлекса лежат
следующие причины: большая длительность ВПСП вставочных нейронов,
порождающих не одиночный ПД, а их серию, которая растягивается на десятки и
сотни миллисекунд, и дисперсия во времени сигналов, проходящих по параллельным
цепочкам нейронов разной сложности и с разными скоростями срабатывания.
В случае очень длительных последействий у рефлексов высшего
порядка, например у ориентировочных рефлексов на звуки с задержкой животного в
позе прислушивания на секунды и минуты, можно в качестве причины такого
последействия предполагать и циркуляцию импульсов в замкнутых нейронных
цепях. У моносинаптических рефлексов последействия, как правило, нет. Это
определяется и свойствами мотонейронов, и наличием их возвратного торможения.
Многие рефлекторные центры обладают свойством постактивационной
потенциации, т. е. усиления ответов на одиночные тестирующие сенсорные
сигналы в течение некоторого времени после окончания ритмической активности.
Этот феномен выявляется и в моносинаптической дуге коленного
рефлекса у млекопитающих, особенно после длительного «отдыха» системы (рис.
1.48). Причина этой постактивационной (или, что то же, посттетанической)
потенциации, длящейся несколько минут, лежит в синаптическом облегчении, видимо,
отражающем накопление остаточного Са2+ в пресинаптических терминалях
при ритмической активности. Гораздо более длительная постактивационная
потенциация наблюдается в синапсах гиппокампа, где она, видимо, имеет более
сложный механизм (см. разд. 3.8.1).
В центрах рефлексов может наблюдаться феномен габитуации —
ослабления реакции, «привыкания» к раздражителю. Это может быть связано с уже
рассмотренной выше синаптической депрессией.
В заключение необходимо указать, что центральным звеньям
рефлекторных дуг, как правило, свойственна меньшая надежность функции, чем
нервным проводникам. Рефлекторные центры более, нежели проводники, страдают
от действия различных неблагоприятных факторов, в частности гипоксии и многих
фармакологических агентов, например наркотиков. Особенно ранимы в этом
отношении центры полисинаптических рефлексов. Это определяется свойствами
синаптических аппаратов вставочных нейронов.
У высших млекопитающих (в том числе человека) ЦНС использует
около 2% всего потребляемого организмом О2. Прекращение подачи О2
в мозг (при остановке кровотока и других расстройствах) на 10 с приводит у
человека к потере сознания, а 4—6—минутная глубокая гипоксия (нехватка O2)
вызывает гибель многих нейронов мозга.
Особая химическая «ранимость» клеток мозга объясняет
существование специального защитного барьера между кровью и межклеточной
жидкостью мозга — гематоэнцефалического барьера.
Этот барьер, сформированный главным образом относительно
проницаемой стенкой мозговых капилляров, пропускает воду, ионы, глюкозу и аминокислоты,
задерживая многие физиологически активные вещества (см. разд. 3.27). Однако в
нем существуют особые участки, где хеморецепторы мозга получают прямую
информацию о наличии в крови гормонов и других не проникающих через барьер
веществ.
У беспозвоночных нервные ганглии также снабжены оболочками,
выполняющими барьерные функции.
1.1.10. Элементы эволюции нервной системы
Предполагают, что исходной формой
нервной системы всех животных была диффузная. Из этой формы в ходе эволюции
вторичноротых сформировалась «спинная» трубчатая нервная система —
спинной и головной мозг, а в ходе эволюции первичноротых, например, насекомых,
— узловая — брюшная нервная цепочка с окологлоточным нервным кольцом
(головным мозгом этих животных).
Основными направлениями
эволюционного развития всех нервных систем, видимо, были централизация
элементов, цефализация (развитие головного мозга, головных ганглиев) и
общее увеличение числа нейронов и их синаптических связей.
По—видимому, параллельно с такой
эволюцией структуры нервной системы шла дифференциация самих нервных элементов
— формирование униполярных и мультиполярных нейронов из «недифференцированных»
веретенообразных нервных клеток (сформировавшихся ранее из миоэпителиальных
элементов).
Важное направление в эволюции
нервных элементов — миелинизация нервных волокон у позвоночных и
формирование гигантских нервных проводников у некоторых беспозвоночных
(например, головоногих моллюсков). Эти изменения (особенно миелинизация)
существенно повысили скорость нервной сигнализации. Вместе с тем молекулярные
механизмы нервной системы — ионные каналы, медиаторы и их рецепторы, — как
сейчас считают, были сформированы на каких—то более ранних стадиях филогенеза
(возможно, на «донервных» стадиях), так как они практически не различаются у
животных разного уровня развития.
В онтогенезе у позвоночных их
нервная система развивается из эктодермы (дорсальной мозговой пластинки,
формирующей нервную трубку). В онтогенезе у беспозвоночных нервная система
развивается из эктодермы и энтодермы. Клетки—предшественники
нейронов называются нейробластами. Их созревание связано с ростом
отростков и установлением синаптических связей. При этом отростки находят
соответствующие мишени путем хемотаксиса с помощью специальных вытянутых
глиальных клеток, играющих роль направляющих структур.
Клетки—предшественники глии (глионов) называются спонгиобластами.
Сформированные (зрелые) нейроны утрачивают способность к размножению; у
большинства же глионов, напротив, эта способность остается. В нервной системе
стареющих животных и человека наблюдается гибель части нейронов и усиленное
размножение глиальных элементов. Однако неясно, является ли нарушение
нейроглиального соотношения компенсаторным процессом или вариантом патологии.
Мышцы у всех высших животных
являются важнейшими исполнительными (рабочими) органами — эффекторами. У
позвоночных различают поперечнополосатые и гладкие мышцы (рис. 1.49).
Поперечнополосатые мышцы формируют двигательные аппараты
скелета, глазодвигательный, жевательный и некоторые другие важные двигательные
аппараты. К поперечнополосатым относится и мышца сердца. Поперечнополосатые
мышцы человека и позвоночных животных (за исключением сердечной) полностью
контролируются ЦНС, они лишены автоматизма, т. е. не способны работать без
«приказа» из ЦНС. Их называют произвольной мускулатурой, имея в виду их
подчинение воле у человека.
Гладкие мышцы позвоночных обслуживают внутренние
органы. Они слабо контролируются ЦНС, обладают автоматизмом и собственной интрамуральной,
или метасимпатической, нервной сетью, в значительной степени
обеспечивающей их самоуправление. Гладкую мускулатуру (а также мышцу сердца)
иногда называют непроизвольной, имея в виду ее неподчинение волевому
контролю у человека.
У беспозвоночных животных также
имеются поперечнополосатые и гладкие мышцы, но их свойства и отношения с ЦНС
несколько иные.
Здесь более подробно будут
рассмотрены свойства поперечнополосатых мышц скелета позвоночных, как наиболее
изученного объекта; менее подробно — свойства сердечной и гладких мышц
позвоночных, а также некоторых типов мышц беспозвоночных животных. Подробное
описание последних приводится в специальных курсах сравнительной физиологии для
университетов.
|
|
|
Рис. 1.49 Схема строения
основных групп мышц у позвоночных животных А — поперечнополосатые мышцы, состоящие из многоядерных
клеток цилиндрической формы; В — сердечная мышца, клетки которой соединены
между собой конец в конец с образованием щелевых контактов, позволяющих электрическому
току поступать от одной клетки к другой; В — гладкая мышца, состоящая из
клеток небольшого размера, веретенообразной формы, имеющих по одному ядру.
Клетки соединены между собой поверхностями через щелевые контакты, образуя
электрически объединенные группы. Иннервация их диффузная и осуществляется за счет высвобождения медиатора
из расположенных вдоль расширений автономного нервного волокна. 1 —
двигательная концевая пластинка, 2 — электрические соединения, 3 — расширения
по ходу нерва. |
1.2.1. Структура и иннервация
поперечнополосатых мышц позвоночных животных
Поперечнополосатые мышцы скелета
позвоночных состоят из множества отдельных мышечных волокон, которые
расположены в общем соединительнотканном футляре и крепятся к сухожилиям, связанным
со скелетом. В некоторых мышцах все волокна параллельны длинной оси мышцы — параллельно—волокнистый
тип. В других мышцах они расположены косо, прикрепляясь с одной стороны к
центральному сухожильному тяжу, с другой — к наружному сухожильному футляру. Такое
строение на продольном срезе напоминает перо птицы — перистый тип (рис.
1.50).
Сила мышцы при прочих равных
условиях пропорциональна числу волокон, иначе площади так называемого
физиологического поперечного сечения мышцы, т. е. площади поверхности, пересекающей
действующие мышечные волокна (конечно, с учетом снижения тяги при «косом»
приложении силы). Каждое волокно скелетной мышцы — это тонкое (диаметром от 10
до 100 мкм),
|
|
|
Рис. 1.50 Архитектура параллельно—волокнистой (А) и
перистой (Б) мышц А — направление тяги волокон совпадает с длинной осью мышцы; Б — волокна идут под острым углом к
длиннику мышцы. |
вытянутое на значительную длину (до
2—3 см) многоядерное образование — симпласт, — возникающее в раннем
онтогенезе из слияния клеток—миобластов.
Основной особенностью мышечного волокна является наличие в
протоплазме (саркоплазме) массы тонких (диаметром порядка 1 мкм) нитей — миофибрилл,
расположенных вдоль длинной оси волокна. Миофибриллы состоят из чередующихся
светлых и темных участков — дисков, причем в массе соседних миофибрилл у
поперечнополосатых волокон одноименные диски расположены на одном уровне
(поперечном сечении). Последнее придает регулярную поперечную исчерченность
(полосатость) всему мышечному волокну.
Комплекс из одного темного и двух прилежащих к нему половин
светлых дисков, ограниченный тонкими Z—линиями (рис. 1.51), называют саркомером.
Миофибриллы, точнее — их саркомеры, — это сократительный аппарат, мотор
мышечного волокна.
Мембрана мышечного волокна — плазмалемма — сходна с
нервной мембраной. Ее особенность состоит лишь в том, что она дает регулярные
Т—образные впячивания (трубки диаметром 50 нм) приблизительно на границах
саркомеров (у лягушек — на уровне Z—линии, у млекопитающих — на уровне границы А—
и J—дисков). Впячивания плазмалеммы увеличивают ее площадь, а значит, общую
электрическую емкость (См).
Внутри мышечного волокна между пучками миофибрилл
параллельно плазмалемме располагаются системы трубочек так называемого саркоплазматического
ретикулума (сети) (рис. 1.52). Каждая такая система трубочек— это
|
|
|
Рис.
1.51 Строение скелетного мышечного
волокна позвоночных животных (объяснения в тексте) |
|
|
|
Рис. 1.52
Саркоплазматический ретикулум и Т—система 1 — миофибриллы; 2 —
поперечная трубочка; 3 — гликогеновые гранулы; 4 — продольные цистерны саркоплазматического ретикулума; 5 —
наружные («концевые») цистерны саркоплазматического ретикулума. |
разветвленная,
но замкнутая система, тесно прилегающая к миофибриллам и примыкающая своими
слепыми концами (концевыми цистернами) к Т—образным впячиваниям плазмалеммы
(Т—системе).
Т—система и саркоплазматический
ретикулум — это аппараты, обеспечивающие передачу сигналов (возбуждения) с
плазмалеммы на сократительный аппарат миофибрилл.
Иннервация поперечнополосатых
мышечных волокон
позвоночных осуществляется мотонейронами спинного мозга или мозгового ствола
(рис. 1.53). Один мотонейрон коллатералями своего аксона иннервирует несколько
мышечных волокон.
Комплекс, включающий один мотонейрон
и иннервируемые мышечные волокна, называют двигательной, или нейромоторной,
единицей (ДЕ или НМЕ).
Среднее число мышечных волокон,
иннервируемых одним мотонейроном, характеризует среднюю величину ДЕ мышцы.
Обратная ей величина называется плотностью иннервации.
Плотность иннервации велика (ДЕ
мала) в мышцах, приспособленных, для «тонких» движений (мышцы пальцев, языка,
наружные мышцы глаз). Наоборот, в мышцах, осуществляющих «грубые» движения
(например, мышцах туловища), плотность иннервации мала (ДЕ велика).
Различают одиночный и множественный
типы иннервации мышечных волокон. Чаще встречается одиночный тип
иннервации, осуществляемый более или менее компактными моторными окончаниями
(синапсами в виде кустика
|
|
|
Рис.
1.53 Мышечное волокно позвоночного
животного А — мышечное веретено и сухожильный орган; В — детали строения мышечного
веретена. Стрелками показано направление передачи нервных импульсов. 1 — нерв, 2 — мышца (экстрафузальные волокна), 3 — несократимый участок мышечного веретена, 4 — мышечное веретено, 5 — сухожилие, в —
аннулоспиральные нервные окончания, 7
— капсула, заполненная лимфой, 8—
интрафузальное мышечное волокно, 9—
сократимый участок мышечного веретена, 10—
сухожильный орган, 11 —
сенсорный нейрон, отходящий от среднего участка веретена, 12— несократимый средний участок
веретена, 13 — двигательное
волокно, подходящее к сократимому концу мышечного веретена. |
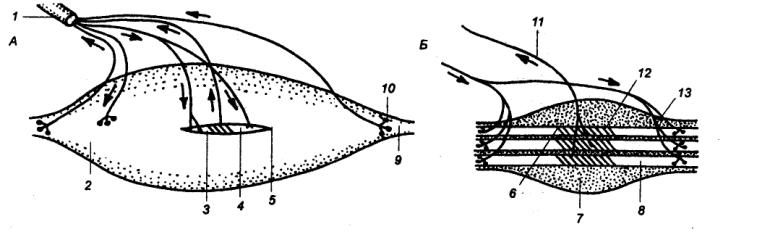
или «подошвы»). Обычно они формируются
аксонами крупных мотонейронов. Мышечные волокна, имеющие такую моторную
иннервацию, в ответ на нервные импульсы генерируют ПД, распространяющиеся по
волокну. Их часто называют фазными и быстрыми, так как они
производят быстрые сокращения.
Множественный тип иннервации волокон представлен
в скелетной мускулатуре амфибий, а также во внешних глазных мышцах
млекопитающих, где имеются также и одиночно иннервированные волокна. На каждом
мышечном волокне при множественной иннервации располагается много моторных
синапсов от одного или нескольких малых мотонейронов. Такие мышечные волокна
(по функции тонические) реагируют на нервные импульсы только локальными
постсинаптическими потенциалами (ПСП) — деполяризациями. Потенциалы действия в
них не генерируются из—за отсутствия в их мембране потенциалозависимых Nа—каналов. Вместе с тем у этих
волокон очень велико входное сопротивление, что обеспечивает и большую величину
ВПСП, и электротоническое распространение деполяризации из синаптических
районов по всему волокну, необходимое для повсеместного запуска сократительного
акта. Сократительный акт здесь более медленный, чем в волокнах с одиночной
иннервацией, поэтому такие волокна часто называют медленными.
Нервное волокно реагирует на
раздражение по правилу «все или ничего», т. е. отвечает на все надпороговые
раздражения стандартным ПД и не отвечает потенциалом действия на подпороговые
раздражения. В силу этого обстоятельства и любая нейромоторная единица
реагирует на раздражение одного ее нейро—аксона по правилу «все или ничего», т.
е. отвечает стандартной электрической реакцией (ПД фазных мышечных волокон, ПСП
медленных тонических мышечных волокон) и стандартным сокращением на
сверхпороговые раздражения и не отвечает на подпороговые стимулы. Но
электрическое раздражение нервного ствола (иннервирующего мышцу) самой
скелетной мышцы в зависимости от силы стимулов вызывает мышечные реакции разной
силы, что связано с разным количеством активируемых ДЕ или мышечных волокон.
Более сильные стимулы активируют большее количество ДЕ (.или мышечных волокон).
Функциональная дифференцировка двигательных единиц
позвоночных. В
разных мышцах и даже в пределах одной мышцы у человека составляющие ее ДЕ могут
отличаться друг от друга своим строением, обменом веществ и функциональными
особенностями. Прежде всего ДЕ отличаются размерами: объемом сомы мотонейрона,
толщиной его аксона и числом входящих в состав мышечных волокон. Большая ДЕ
включает крупный α—мотонейрон с толстым аксоном, образующим значительное число
концевых веточек в мышце, иннервирующих большое количество мышечных волокон.
Скорость проведения по аксону находится в прямой связи с его диаметром (см.
1.1.4). У малых мотонейронов скорость проведения ПД и частота импульсации
меньше.
По функциональным характеристикам ДЕ разделяют на быстрые и
медленные. Отмечается тесная корреляция между свойствами мотонейронов и
иннервируемыми ими мышечными волокнами. Чем меньше тело мотонейрона, тем
большим входным сопротивлением он обладает, тем выше его возбудимость и
вовлекаемость в рефлекторные акты, и наоборот (принцип размерности Хеннемана). Медленные
мотонейроны, как правило, низкопороговые, высоковозбудимые, т. к. это малые
мотонейроны. Уже при реализации очень слабых статических сокращений мышц у
медленных мотонейронов обнаружиается устойчивый уровень импульсации. По мере
увеличения силы мышечного сокращения частота разрядов этих клеток меняется
незначительно. Их называют малоутомляемыми, или неутомляемыми,
мотонейронами, поскольку они способны поддерживать длительный разряд без
заметного снижения частоты на протяжении длительных отрезков времени.
Соответственно, медленные мышечные волокна способны к
выполнению длительной работы преимущественно аэробного характера. Они окружены
богатой капиллярной сетью, позволяющей им получать обильное снабжение
кислородом из крови. Повышенное содержание миоглобина, обусловливающего красный
цвет этих волокон, облегчает транспорт кислорода внутри мышечных клеток к
митохондриям. Их также много. Все эти факторы обусловливают использование
медленными мышечными волокнами более эффективного аэробного окислительного пути
энергопродукции и определяют их высокую выносливость.
Быстрые высокопороговые мотонейроны включаются в активность для
обеспечения динамических и относительно больших по силе статических сокращений мышц,
а также в начале любого сократительного процесса, чтобы увеличить скорость
нарастания напряжения мышцы («градиент силы»). Чем больше сила и скорость
движений, тем значительнее участие быстрых ДЕ. Они относятся к утомляемым,
т. к. не способны к длительному поддержанию относительно высокочастотного
разряда.
Входящие в состав быстрых ДЕ мышечные волокна более толстые,
содержат больше миофибрилл, обладают большей силой, чем медленные волокна. В
них снижено содержание митохондрий, миоглобина и жиров, ниже активность
окислительных ферментов, около них меньше сеть капилляров. Волокна этого типа
(их еще называют белыми) обладают запасами гликогена, активность
гликолитических ферментов в них высокая. Не обладая большой выносливостью, эти
волокна более приспособлены для сильных, но относительно кратковременных
сокращений, для выполнения работ большой мощности.
1.2.2. Механизм мышечного возбуждения
В поперечнополосатых волокнах скелетных мышц, как и в
нервных волокнах, мембранный потенциал покоя (МПП) определяется
электрохимическим градиентом ионов K+. Именно последний
является причиной пассивного перемещения ионов К+ через мембрану. Но
здесь в мышце проницаемость мембраны для ионов калия — PК примерно равна проницаемости для
ионов хлора — PCl. Концентрационные градиенты К+ и С1 —
выравниваются так, что
МПП = ек = 58 lg[K+]нар/(К+)вн ЕCl= 58 lg (Cl—)вн(Сl—)нар
Эта ситуация соответствует равновесию Доннана. В
такой системе с двумя потенциалобразующими ионами изменение градиента для
одного из них не приводит к ожидаемому изменению МПП до тех пор, пока не
произойдет соответствующего изменения градиента у другого иона. Например, рост
концентрации К+нар не снижает МПП до ожидаемого значения,
пока градиент Сl— не упадет за счет его вхождения в волокно.
Ионный механизм ПД в фазных мышечных волокнах аналогичен тому, который описан для
нервного волокна. Развитие ПД связано с входящим натриевым током, реполяризация
— с выходящим калиевым током.
Однако силы токов здесь существенно больше, что соответствует
большей величине емкости мембраны, разряжаемой и заряжаемой в процессе развития
и компенсации ПД. Большей длительности ПД у фазных волокон соответствует и
значительная продолжительность рефракторных фаз. С этим связана меньшая, чем у
нервных волокон, лабильность. При длительности ПД в 2 мс и средней скорости
распространения 3 мм/мс протяженность возбужденного участка на мембране волокна
достигает б мм. Заметим, что у «тонических мышечных волокон», лишенных
способности генерировать ПД, ПСП при малых интервалах между вызывающими их
нервными импульсами способны суммироваться.
Суммарная электрическая активность скелетных мышц
позвоночных формируется из электрических сигналов разнорасположенных в мышце
волокон. В мышцах, состоящих из одиночно иннервированных фазных волокон
(например, в портняжной мышце лягушки, в большинстве скелетных мышц
млекопитающих) в электромиограмме (ЭМГ), снимаемой биполярно с помощью
вкалываемых игольчатых электродов или электродов, накладываемых на кожу над
мышцей, преобладают быстрые колебания двухфазной, реже многофазной формы. У
здорового человека в покое, в расслабленной, незадействованной в поддержании
тонуса мышце электрическая активность слаба. При небольшом напряжении,
например, при поддержании позы, ДЕ совершенно асинхронно разряжаются с
небольшой частотой (5—10 импульсов в секунду). Поэтому колебания в суммарной
ЭМГ невелики, но относительно часты. Если, как это бывает при больших мышечных
усилиях, активность единиц учащается (частота разрядов ДЕ повышается в среднем
до 20—30 имп/с), но при этом синхронизируется, то суммарная частота колебаний в
ЭМГ может существенно и не измениться или даже упасть, но амплитуда их
возрастает. Этот рост амплитуды волн ЭМГ имеет те же причины, что и рост
амплитуды составного ПД нерва при увеличении числа синхронно активных волокон
(см. разд. 1.1.4). Суммарные, интерференционные ЭМГ, представляющие собой
разноамплитудный частокол разрядов, анализируются по градациям амплитуды и
частоты импульсов. При этом учитывается, что существует примерно линейная
зависимость между амплитудой колебаний ЭМГ и развиваемой мышцей силой, ее
функциональным состоянием. Регистрацию и анализ ЭМГ человека широко используют
в физиологии труда и спорта, а также в невропатологии.
Помимо суммарных отведении применяют регистрацию ПД
отдельных ДЕ с помощью вкалываемого в мышцу «концентрического» электрода с
малой отводящей поверхностью (проволочка в игле для инъекций). Удается их
отводить и накожными электродами. Сигналы ДЕ при этом имеют форму двух— или
трехфазных колебаний стандартной амплитуды. Количество работающих ДЕ, характер
их деятельности легко дискриминировать по амплитуде их разрядов.
При детальном анализе разрядов ДЕ показано, что они состоят
из сложного паттерна (от англ. pattern — узор, рисунок), более частого
вначале и затем постепенно урежающегося. Передняя
|
|
|
Рис. 1.54 Суммарные
электромиограммы фазной (Б) и фазно—тонической (Г) мышц А, В — схемы регистрации
электромиограмм: 1 — фазное
волокно, 2 — тоническое
волокно; объяснение см. в тексте. |
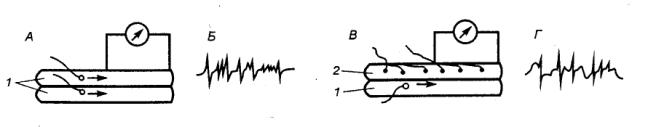
часть разряда запускает
сократительную реакцию мышечных волокон, затем данная ДЕ выключается, но зато
включаются другие клетки в пуле (от англ. pool— совокупность, обьединение) α—мотонейронов спинного мозга.
В тонических волокнах скелетных мышц амфибий и глазодвигательных
мышц млекопитающих, имеющих полисинаптическую иннервацию, как уже отмечалось,
ПКП (иначе ПСП) не порождают ПД. В суммарной ЭМГ мышцы, содержащей значительный
процент тонических волокон, наблюдаются относительно медленные волны однофазной
формы (той или иной амплитуды и полярности), следующие в разных ритмах, которые
порождаются ПСП многочисленных синапсов (рис. 1.54).
1.2.3. Передача сигнала с
плазмалеммы на сократительный аппарат миофибрилл
Сократительный аппарат
скелетно—мышечного волокна приводится в активное состояние ионами Са2+.
Искусственное введение Са2+
в волокно тоже вызывает его сокращение. В покое концентрация ионов Са2+
в миоплазме весьма низка (10—8 моль/л), она значительно ниже порога
для запуска сокращения (10—6 моль/л). В неповрежденное мышечное
волокно этого типа даже при возбуждении внешний Са2+ входит в очень
небольших количествах. Поэтому запуск сокращения здесь осуществляется за счет
выброса Са2+ из его внутриклеточного депо — саркоплазматического
ретикулума. Концентрация Са2+ в нем достигает 10—4
моль/л.
То, что при возбуждении мышечных
волокон в их миоплазме резко возрастает концентрация Са2+,
демонстрируют опыты с экворином (белком светящихся медуз, реагирующим на
Са2+ свечением). Если экворин введен в миоплазму волокна, то при
каждом возбуждении (сокращении) регистрируется вспышка свечения (рис. 1.55).
Выброс Са2+ из саркоплазматического ретикулума в миоплазму, а за ним
и длительное сокращение (контрактура) могут быть провоцированы некоторыми
фармакологическими агентами, например кофеином.
Проницаемость мембраны
саркоплазматического ретикулума для Са2+ в покое мала, а утечка Са2+
компенсируется постоянной работой кальциевого насоса саркоплазматического
ретикулума и, по—видимому, задерживается электрической поляризацией его
мембраны. Выход Са2+ по концентрационному градиенту осуществляется
при активации мембраны ретикулума, открытии в ней Са—каналов. Активация
мембраны ретикулума происходит при распространении ПД внешней мышечной мембраны
(ПД) на поперечные трубочки.
|
|
|
Рис. 1.55 Соотношение во времени
потенциала действия мышцы (1), роста концентрации Са2+ в саркоплазме (2) и
сокращения (3) на примере портняжной мышцы лягушки (при ОС) Концентрацию
Са2+ определяли с помощью экворина. |
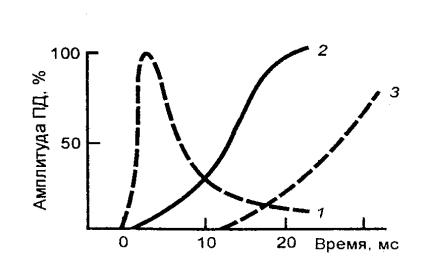
|
|
|
Рис. 1.56 Потенциалы действия наружной мембраны мышечного
волокна (1) и мембраны его поперечных трубочек (2) А — в норме; Б —
ПДм и отсутствие ПД трубочек после
разрушения последних; В, Г —
соответствующие схемы регистрации. |
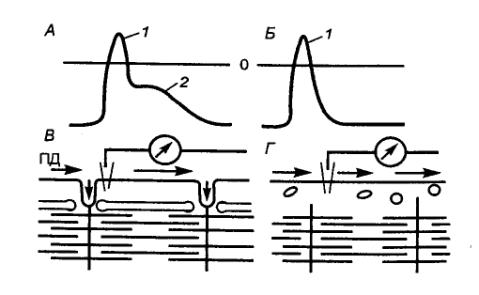
Потенциал действия поперечной
трубочки (Т—системы), как полагают, действует петлей своего тока на мембрану
саркоплазматического ретикулума через электрический синапс, формируемый
T—системой и концевой цистерной ретикулума (рис. 1.56). Локальное электрическое
раздражение T—системы приводит к сокращению, локализованному в прилежащих
саркомерах.
Таким образом, запуск
сократительного акта производится следующей цепочкой процессов: ПДм →
ПДт—системы→ активация мембраны саркоплазматического
ретикулума → выход Са2+ в миоплазму → сокращение.
В мышцах, лишенных ПДм,
активация саркоплазматического ретикулума осуществляется петлей тока ПСП. После
сокращения ионы Са2+ быстро всасываются в ретикулум и наступают
расслабление, покой и вместе с тем готовность механизмов к новой реакции.
ПД Т—системы мышечного волокна
регистрируется внутриклеточным микроэлектродом как дополнительный низкий и
растянутый во времени пик, расположенный сразу вслед за пиком ПДм.
Функциональная мембранно—миофибриллярная (иначе электромеханическая) связь
может быть нарушена. В частности, она нарушается при обработке мышцы
гипертоническими растворами глицерина (400—800 ммоль/л) с последующей отмывкой
нормальным раствором Рингера. В этой ситуации в связи с процессом вакуолизации
Т—системы ликвидируются. При этом ПДм полностью сохраняются, но
исчезают ПДт—системы и сократительные реакции в ответ на ПД
поверхностной мембраны.
1.2.4. Структура саркомера и
механизм сокращения мышечного волокна
Саркомер (повторяющийся сегмент миофибриллы)
состоит из двух половин светлого, оптически изотропного диска (I) и одного темного, анизотропного (А)
диска (см. рис. 1.51). Электронно—микроскопический и биохимический анализы
показывают, что у позвоночных темный диск сформирован параллельным пучком
толстых (диаметром порядка 10 нм) миозиновых нитей, имеющих длину около 1,6
мкм. Молекулярная масса белка миозина составляет 500 килодальтон (кДа).
На нитях миозина расположены выступы — головки миозиновых молекул длиной 20 нм.
В светлых дисках имеются тонкие нити (диаметром 5 нм, длиной 1 мкм),
построенные из белка актина (молекулярная масса 42 кДа), а также тропомиозина
и тропонина. В районе Z—линии, разграничивающей соседние саркомеры,
пучок тонких нитей скреплен Z—мембраной.
Соотношение тонких и толстых нитей в
саркомере составляет 2:1. Миозиновые и актиновые нити саркомера расположены
так, что тонкие нити могут свободно входить между толстыми, т. е. «задвигаться»
в А— диск, что и происходит при сокращении мышцы. В силу этого длина
светлой части саркомера —I—диска — может быть разной: при пассивном растяжении мышцы
она увеличивается до максимума, при сокращении может уменьшаться до нуля.
|
|
|
Рис. 1.57 Действие Ca2+ во время
активации миофибриллы. А —
актиновая и миозиновая нити на продольном сечении волокна; Б — они же на поперечном сечении. 1— «шейка», 2— «головка», 3 — актиновый мономер, 4 — тропонин, 5 — тропомиозин, 6 — миозиновая нить. |
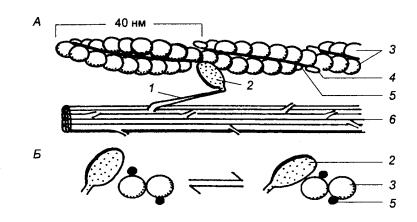
Механизм сокращения состоит в
перемещении (протягивании) тонких нитей вдоль толстых к центру саркомера за счет
«гребных» движений головок миозина, периодически прикрепляющихся к тонким
нитям, т. е. за счет поперечных актомиозиновых мостиков.
При исследовании движения мостиков
методом дифракции рентгеновских лучей показано, что амплитуда этих движений
составляет 20 нм, а частота — 5—50 колебаний/с. Каждый мостик то прикрепляется
и тянет нить, то открепляется и «ждет» условий для нового прикрепления. Но
огромное множество мостиков работает «вразнобой», и поэтому их общая тяга
оказывается равномерной во времени. Разнообразные исследования привели к
следующему представлению о механизме циклической работы миозинового мостика.
В покое мостик заряжен энергией
(миозин фосфорилирован), но он не может соединиться с нитью актина, ибо между
ними вклинена система из нити тропомиозина и глобулы тропонина (рис. 1.57).
При активации мышечного волокна и
появлении в миоплазме ионов Са2+ (в присутствии АТФ) тропонин
изменяет свою конформацию и отодвигает нить тропомиозина, открывая для
миозиновой головки возможность соединения с актином. Соединение головки
фосфорилированного миозина с актином приводит к резкому изменению конформации
мостика (его «сгибанию») и перемещению нити актина на один шаг (20 нм) с
последующим разрывом мостика. Энергию на этот акт дает распад макроергической фосфатной
связи, включенной в фосфорилактомиозин.
После этого в силу падения
локальной концентрации Са2+ и отсоединения его от тропонина
тропомиозин снова блокирует актин, а миозин снова фосфорилируется за счет АТФ.
Последний не только заряжает системы для дальнейшей работы, но и способствует
временному разобщению нитей, т. е. пластифицирует мышцу, делает ее способной
растягиваться под влиянием внешних сил. Полагают, что на одно рабочее
движение одного мостика тратится одна молекула
|
|
|
Рис. 1.58 Влияние АТФ на изолированные актомиозиновые комплексы—нити А —
саркомер, Б — схема
миофибриллы, Z — Z—линии; 1 —
саркомер, 2 — поперечный
мостик, 3 — миозин, 4 —
актиновая нить, 5 — миозиновый стержень, 6 — «головка», 7— «шейка», 8 — миозиновая нить. |
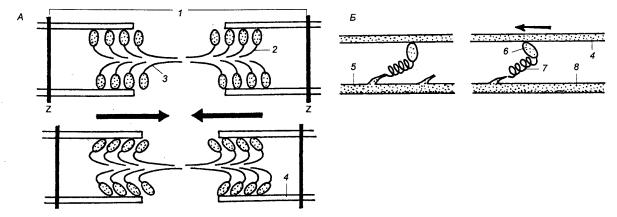
АТФ, причем
роль АТФазы играет актомиозин (в присутствии ионов Mg2+ и Са2+). Всего при одиночном сокращении
тратится 0,3 мкмоль АТФ на 1 г мышцы.
Необходимо еще раз подчеркнуть, что
АТФ играет в мышечной работе двоякую роль: фосфорилируя миозин, он обеспечивает
энергией сокращение, но, находясь в свободном состоянии, он обеспечивает и
расслабление мышцы (ее пластификацию). При исчезновении АТФ из миоплазмы
развивается непрерывное сокращение — контрактура.
Все эти феномены могут быть
продемонстрированы и на изолированных актомиозиновых комплексах—нитях. Такие
нити без АТФ твердеют (ригор), при добавлении АТФ — расслабляются, а при
добавлении еще и Са2+ производят обратимое сокращение, аналогичное
нормальному (рис. 1.58).
Различают два режима сократительной
деятельности мышц: изотонический (когда мышца укорачивается при
неизменном внутреннем напряжении, что, например, бывает при небольшой величине
поднимаемого груза) и изометрический (при этом режиме мышца не
укорачивается, а лишь развивает внутреннее напряжение, что бывает при ее
закреплении с обоих концов и при нагрузке неподъемным грузом). Кроме того,
различают два основных вида мышечных сокращений: одиночные и тетанические.
Одиночные сокращения (или
напряжения) возникают при действии на мышцу одиночного нервного импульса или
краткого толчка тока.
При этом в миоплазме мышцы происходит кратковременный подъем
концентрации Са2+, сопровождаемый кратковременной работой — тягой
мостиков, сменяющейся снова покоем. В изометрическом режиме одиночное
напряжение начинается через 2 мс после пика ПД, причем напряжению предшествует
краткое и незначительное так называемое латентное расслабление,
создаваемое выходом Са2+ из саркоплазматического ретикулума, что
приводит к потере ретикулумом тургора (от лат. turgeo — быть наполненным, набухшим).
(напряженности и эластичности ткани). В портняжной мышце лягушки
одиночное напряжение достигает максимума за 0,15—0,20 с и далее спадает
экспоненциально за 0,7—0,8 с. В изотоническом режиме одиночное сокращение
портняжной мышцы лягушки имеет фазу подъема 0,05 с и фазу спада 0,05 с. Мышца
укорачивается на 5—10% длины покоя.
Тетанические сокращения возникают
при ритмической стимуляции моторного нерва или мышцы. При редкой стимуляции
(около 15 стим/с) происходит зубчатый (неполный) тетанус, при более частой
(выше 25 стим/с) — сплошной, или гладкий. При этом происходит слияние и
наложение (суперпозиция) одиночных сокращений (напряжений).
Общая величина укорочения (и
напряжения) в экспериментальных условиях растет, и тем больше, чем чаще нервная
активация. Это продолжается до известных пределов, так как при чрезмерной
частоте нервных импульсов развивается частичный блок в синапсе, так называемый пессимум
(по Н. Е. Введенскому). Укорочение мышцы в состоянии оптимального тетануса
составляет 20%.
Активность нервного ствола при его
искусственной супрамаксимальной стимуляции—конечно, лишь модель работы пула
мотонейронов. Обычный режим естественного сокращения мышечных волокон близок к
зубчатому тетанусу. Однако такой режим функционирования единиц, составляющих
ДЕ, не сказывается на сокращении целой мышцы; оно напоминает гладкий тетанус.
Причина этого — асинхронность работы мотонейронов и обусловленная этим
асинхронность сократительной реакции отдельных мышечных волокон.
Работа сократительного механизма
(акто—миозиновых мостиков) в разных условиях. Сократительный аппарат
миофибрилл подключен последовательно к эластическому элементу (сухожилию) и,
кроме того, имеет параллельно включенный пластический вязкостный элемент (рис.
1.59). У покоящейся мышцы вязкость мала, а у возбужденной велика (зацепление
мостиков).
|
|
|
Рис. 1.59 Электромеханическое
сопряжение А — мышца (1) с грузом (2); Б — эквивалентная схема мышцы:
3 — эластический элемент
(сухожилия и т. п.), 4 —
сократительный элемент (система мостиков, тянущих нити), 5 — вязкий элемент. |
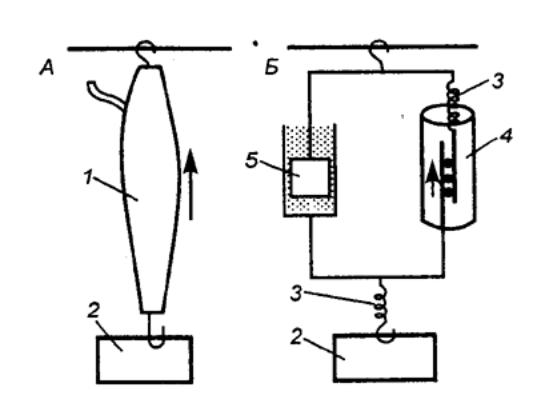
В изометрическом режиме активности
работа мостиков приводит лишь к растяжению и напряжению эластического элемента.
Эта работа может быть изображена как ритмическое микроперемещение тонких нитей
мостиками к центру саркомёра, каждый раз сопровождаемое возвратом в исходное
состояние за счет эластической силы (рис. 1.60). Общая сила мышцы Fм при этом пропорциональна
силе элементарного рывка (мостика) Fэ и числу
работающих мостиков N при постоянной средней частоте их срабатывания: Fм = Fэ N.
Зависимость Fм от числа
работающих мостиков демонстрируется в опыте с оценкой Fм изометрических напряжений
при разной исходной длине мышцы (саркомеров) I (рис. 1.61). Оказывается,
что если мышца перерастянута так, что тонкие и толстые нити ее саркомеров не
перекрываются, то Fм = 0. По
мере приближения к натуральной длине покоя l0, при которой все головки миозиновых нитей могут контактировать
с актиновыми нитями, Fм растет до
максимума. Но при дальнейшем уменьшении I ввиду «заползания» тонких
нитей в соседние саркомеры и уменьшения возможной амплитуды их перемещения, а
значит, и снижения растяжения эластического элемента внешняя Fv падает снова.
|
|
|
Рис. 1.60 Соотношение сократительного,
эластического и вязкого компонентов мышцы. А — расслабленное мышечное волокно с поляризованной клеточной
мембраной: 1 — саркомер, 2 — клеточная мембрана, 3 —
поперечная трубка, 4 — терминальная
цистерна, 5 — продольная трубочка; Б
— потенциал действия меняет полярность мембраны клетки и поперечных
трубочек на противоположную; В —
момент исчезновения потенциала действия; Г — временная последовательность событий при
электромеханическом сопряжении от «латентного периода» до начала сокращения. |
|
|
|
Рис. 1.61
Зависимость силы F максимального
изометрического тетануса волокна от заданной длины I саркомера (А) и объяснение этой зависимости
разным количеством актомиозиновых мостиков, формирующихся при различной
степени растяжения волокна и, соответственно, перекрытия толстых и тонких нитей (Б)
|
|
|
|
Рис.
1.62 Соотношение между нагрузкой Р и
скоростью v укорочения мышцы. (для руки человека)
При данной мощности мышцы чем тяжелее поднимаемый груз, тем ниже скорость его
подъема, т. е. укорочения мышцы (объяснение см. в тексте). |
|
|
|
Рис. 1.63 Соотношение
между силой изометрического сокращения и задаваемой длиной мышцы Длина мышцы, см А — схема
опыта; Б — графическое отражение измеряемых соотношений: 1 — пассивное напряжение
растягиваемой мышцы в покое; 2 —
общая сила, развиваемая мышцей при максимальном тетанусе; а — предварительное
растяжение; б — регистратор
силы. |
|
Сила мышцы
и ее работа. Величина сокращения мышцы зависит от ее морфологических
свойств и функционального состояния. Сила мышц, их способность к работе,
скорость сокращения и расслабления, выносливость в большой мере определяются
процентным соотношением двух типов волокон. При преобладании в мышце быстрых
волокон — выше скорость сокращения и максимальная сила, развиваемая мышцей при
быстром сокращении. Если больше медленных волокон, мышца выносливее, обладает
способностью производить длительную работу.
Систематические интенсивные
упражнения приводят к увеличению диаметра мышечных волокон за счет повышения
количества протофибрилл — рабочая гипертрофия. Противоположным
состоянием является атрофия мышц от бездеятельности. При старении быстрые
волокна в мышцах гипотрофируются раньше, чем медленные. Это связывается со
снижением двигательной активности пожилых людей, с уменьшением физических
нагрузок большой интенсивности.
Выше уже отмечалось, что при прочих
равных условиях сила мышцы определяется ее физиологическим поперечным сечением.
Для сравнения силы разных мышц максимальный груз, который они в состоянии
поднять, делят на площадь их физиологического поперечного сечения. Вычисленная
таким образом сила (в кг/см2) для трехглавой мышцы плеча человека —
16,8, сгибателя плеча — 8,1, икроножной мышцы — 5,9, гладких мышц — 1.
Подсчитано, что одиночное мышечное волокно способно развить напряжение 100—200
мг.
Сила скелетной мышцы определяется
рядом центральных факторов. Во—первых, числом ДЕ, рекрутируемых в данный момент
времени. Во—вторых, степенью синхронности работы этих ДЕ. Наконец, степенью
задействования каждой ДЕ, т. е. интенсивностью импульсного потока, следующего
по аксону к мышце. Степень доминирования каждого из этих факторов в ДЕ
варьирует в конкретных ситуациях.
Внешняя механическая работа мышцы.
(А) возможна только в изотоническом
режиме с
грузом при условии, что вес груза Р < Fм. В этом случае сократительный аппарат сначала
растягивает и напрягает эластический элемент — сухожилие, а затем поднимает
подвешенный к нему груз Р.
При подъеме разных грузов на одну и
ту же высоту от подпорки до упора, например, в условиях тетанической активации
мышцы, чем больше груз, тем он медленнее поднимается (рис. 1.62), т. е. тем
большее время тратится на эту работу. При постоянных средней частоте работы
мостиков, Fэ и N
это означает, естественно, и большую трату энергии, что соответствует и большей
внешней механической работе. Внешняя механическая работа мышцы по подъему груза
Р на высоту h, как уже
отмечалось, исчисляется по формуле:
А = Ph = РΔl,
где AZ — укорочение мышцы. Заметим, что при Р = О А
= 0 и что при Р ≥ p0, т. е. при неподвижности груза, А тоже равна нулю.
Внешняя механическая работа мышцы максимальна при средних нагрузках. Это
называют законом средних нагрузок.
Если мышца предварительно
растянута, то ее пассивное напряжение добавляется к активному, возникающему при
возбуждении, но последнее (по рассмотренным выше причинам) при чрезмерном
растяжении падает до нуля (рис. 1.63).
Энергетические источники для
сокращения и коэффициент полезного действия мышцы.
Энергетическим источником для мышечного сокращения по существу является АТФ
(рис. 1.64).
Источником энергии и материала для
ресинтеза АТФ являются распад креатинфосфата, анаэробный гликолиз и окислительное
фосфорилирование субстратов (в митохондриях).
Необходимо заметить, что и
хемомеханическая реакция в системе актомио—зиновых мостиков, и все последующие
процессы идут с потерей энергии в форме теплоты. Коэффициент полезного
действия (КПД) мышцы как механической машины (здесь надо оговориться, что мышца
не только механическая машина, но и основной обогреватель организма, поэтому ее
тепловой выход не бесполезен) может быть вычислен по формуле:
КПД=A/(A+Q)
Тепловой выход мышцы (Q) сложен. Во—первых,
существует выход теплоты при изометрическом напряжении мышцы, при задержке ее
сокращения стопором. Этот выход (Q1) называют теплотой
активации. Если на фоне этого состояния мышца с грузом освобождается от
стопора и, сокращаясь, поднимает груз, то она выделяет дополнительную теплоту (Q2) — теплоту укорочения, пропорциональную
механической работе (эффект Фенна). По—видимому, перемещение нитей с
подключением в работу все новых (заряженных энергией) мостиков способствует
высвобождению дополнительной энергии (и механической, и тепловой).
В условиях свободного подъема груза
теплота активации (соответстствующая фазе напряжения сухожилия) и теплота
укорочения сливаются, образуя так называемое начальное теплообразование.
После сокращения (одиночного или краткого тетануса) в мышце возникает задержанное
теплообразование, которое связано с процессами, обеспечивающими ресинтез
АТФ, оно длится
|
|
|
Рис. 1.64 Энергетика мышцы А — отношения
между АТФ, креатинфосфатом и процессом дыхания при сокращении мышцы: МК —
молочная кислота, ПК — пировиноградная кислота, Кр — креатин, КрФ —
креатинфосфат; Б —
потребность в кислороде при физической работе. Показано соотношение между
потреблением кислорода и созданием кислородной задолженности. |
секунды и минуты.
Если рассчитывать КПД мышцы по начальному теплообразованию, то он составит
примерно 50—60% (для оптимальных условий стимуляции и нагрузки). Если же вести
расчет КПД исходя из видов теплопродукции, связанных с данной механической
работой, то КПД составит примерно 20—30% (КПД мышц млекопитающих падает при
адаптации к холоду, что способствует усилению теплопродукции в организме).
Кислородная задолженность и
утомление. Известно, что 1 моль АТФ дает 48 кДж энергии и что для
ресинтеза 1 моля АТФ нужно 3 моля кислорода. В условиях срочной мышечной работы
человека (бег на короткую дистанцию, прыжок, подъем штанги) запасов кислорода в
организме не хватает для немедленного ресинтеза АТФ. Такая работа
обеспечивается за счет мобилизации энергии анаэробного распада креатинфосфата и
гликогена. В итоге в организме накапливается много недоокисленных продуктов
(молочной кислоты и др.). Создается кислородная задолженность. Такой
долг погашается после работы за счет автоматической мобилизации дыхания и
кровообращения (одышка и усиленное сердцебиение после работы). Если же работа,
несмотря на наличие кислородного долга, продолжается, то наступает тяжелое
состояние (утомление), которое иногда прекращается при достаточной мобилизации
дыхания и кровообращения (второе дыхание спортсменов).
В естественных условиях утомление
развивается прежде всего как отказ от работы аппаратов ЦНС. При этом
электрическое раздражение мышц выявляет их дееспособность. Но и изолированные
мышцы, а также децентрализованные мышцы в организме при их прямой стимуляции
или стимуляции соответствующего нерва работают не бесконечно. Они тоже
утомляются. С разной скоростью утомляются так называемые быстрые и медленные
мышцы, имеющие разный тип энергетического обеспечения. Волокна быстрых
фазных мышц, например портняжной мышцы лягушки или длинного разгибателя
пальцев крысы, богаты гликогеном, но имеют мало митохондрий и практически не
содержат миоглобина (аналог гемоглобина крови, депонирующий кислород). Они
работают на энергетической основе анаэробного цикла реакций, а значит, быстро,
но недолго. Эти мышцы быстро утомляются. Волокна медленных мышц с
одиночной иннервацией, генерирующих ПД, например камбаловидной мышцы крысы,
наоборот, бедны гликогеном, но богаты митохондриями и миоглобином, придающим им
красный цвет. Эти мышцы при работе
используют
главным образом энергию аэробных реакций. Они особенно хорошо кровоснабжаются и
могут работать долго без утомления.
Специальные тонические мышечные
волокна, имеющие множественную иннервацию и работающие на основе низкочастотного
локального возбуждения (ПСП), вообще слабы и, соответственно, тратят мало
энергии. Поэтому при небольшом энергетическом обеспечении (в них относительно
мало гликогена и митохондрий) они могут долго работать.
Утомление изолированных скелетных мышц,
выражающееся в снижении их силы и далее в отказе от функции, имеет в качестве
своей основной причины накопление в мышцах (внутри волокон в межклеточных
щелях) ряда продуктов метаболизма, прежде всего молочной кислоты (L—лактата), а
также НзР04. Эти вещества нарушают функции мышечных и нервных элементов и в
особенности нервно—мышечную передачу. В свою очередь, накопление
L—лактата (недоокисленного продукта) зависит от нехватки O2. Что касается энергетических
ресурсов мышцы (гликогена, креатинфосфата), то они при обычных условиях
утомления не исчерпываются.
1.2.7. Особенности мышцы сердца
позвоночных животных
Сердце у позвоночных построено из
вытянутых одноядерных мышечных клеток — кардиомиоцитов, обладающих
поперечной исчерченностью. Таким образом, мышца сердца является
поперечнополосатой.
Важная особенность строения мышцы
сердца заключается в том, что кардиомиоциты связаны между собой низкоомными
электрическими контактами — запирающими фасциями (нексусами). Таким
образом, масса кардиомиоцитов в конечном счете образует функциональную
единицу, что важно для выполнения сердцем функции насоса.
Электрическое раздражение любой
точки сердца в силу этих связей вызывает электрическую и сократительную реакцию
всех его мышечных клеток. Поэтому сердце (в отличие от скелетной мышцы,
включающей много независимых ДЕ) отвечает на электрическое раздражение как
единица по правилу «все или ничего».
В естественных условиях стимул к
сокращению сердца возникает в самом сердце, точнее в специфических мышечных
клетках синусно—предсердного (синусного) узла (у млекопитающих он
находится в правом предсердии). В этих клетках строго периодически наблюдается
спонтанная деполяризация (из—за роста PNа) приводящая к развитию ПД.
Отсюда ПД распространяется по мышечным элементам предсердий и далее через
мышечные клетки предсердно—желудочкового узла и пучка Гиса к мышце желудочка
(подробнее см. разд. 8.1.3).
Потенциал действия кардиомиоцитов
предсердий имеет большую длительность, чем в скелетно—мышечных волокнах. Но
особенно длительны ПД в кардиомиоцитах желудочков сердца. У этих ПД проявляется
обычный крутой подъем с овершутом, но затем обнаруживается плато (на уровне,
близком к пику ПД). Длительность этого плато, например в мышце сердца собаки,
составляет около 250 мс. Затем ПД быстро компенсируется (табл. 1.6).
Таблица
1.6
Величины мембранного потенциала покоя (МПП) и потенциала
действия (ПД) в некоторых поперечно—полосатых мышечных волокнах позвоночных
|
Объект |
МПП, мВ |
Амплитуда ПД, мВ |
Длительность ПД, мс |
|
Скелетно—мышечное волокно лягушки |
—90 |
120 |
2,5 |
|
Мышечное волокно желудочка сердца собаки |
—80 |
100 |
250,0 |
Ионный механизм ПД волокон
сердца позвоночных состоит в быстрой активации деполяризующим стимулом
натриевых и натрий—кальциевых каналов при параллельной инактивации части
калиевых каналов (это особое свойство К—каналов данного объекта). Последующая
инактивация каналов входящих токов (Na—Ca—каналов) происходит медленно. И
поэтому активация части К—каналов здесь задержана на многие десятки (сотни)
миллисекунд удерживающей деполяризацией. Лишь при достижении определенного МП
начинается открытие массы К—каналов и спад (завершение) ПД. Такая организация
ПД клеток желудочка сердца обеспечивает их относительно длительное сокращение
(250—300 мс), что необходимо для выполнения функции нагнетательного насоса.
Длительность ПД кардиомиоцитов определяет длительную абсолютную рефракторную
фазу сердца.
Суммарная электрическая активность сердца
позвоночных и человека представляет собой ритмическое повторение комплекса
колебаний, включающего зубцы Р, Q, R, S, Т (см. разд.
8.3).
Электромеханическая связь в
сердечно—мышечных элементах в общем подобна описанной в скелетных мышцах
позвоночных. Особенность состоит лишь в том, что источником ионов Са2+
здесь отчасти является саркоплазматический ретикулум (развитый относительно
слабо), остальной Са2+ поступает в возбужденные кардиомиоциты извне.
Сократительный механизм сердечно—мышечных волокон позвоночных подобен
скелетно—мышечному. Зависимость силы напряжения мышцы сердца от исходной длины
ее волокон имеет тот же характер, что и в скелетной мышце (см. рис. 1.63).
Для желудочков сердца как
нагнетательных насосов, открывающих выходные клапаны давлением на заключенную в
полости желудочков кровь, важно, что их предварительное пассивное растяжение
поступающей кровью усиливает общее напряжение при активном сокращении. На этой
основе осуществляется саморегуляция сердечной функции — усиление выброса
крови при усилении ее притока (закон Старлинга).
Сердечная мышца позвоночных
работает автоматически, т. е. без приказов из ЦНС. Однако сердце имеет симпатическую
(адренергическую), парасимпатическую (холинергическую) и местную метасимпатическую
иннервацию, обеспечивающую центральный контроль ритма и силы сердечной
деятельности. Подробности нервной регуляции сердца рассматриваются далее (см.
разд. 9.4).
1.2.8.
Общая физиология гладких мышц позвоночных животных
Гладкие мышцы позвоночных,
формирующие мышечные слои стенок желудка, кишки, мочеточников, бронхов,
кровеносных сосудов и других внутренних органов, построены из веретенообразных
одноядерных мышечных клеток. Толщина этих клеток колеблется от 2 до 10 мкм,
длина — от 50 до 400 мкм. Отдельные клетки в гладких мышцах связаны между собой
низкоомными электрическими контактами — нексусами. В гладкомышечных клетках
имеются такие же миофибриллы, как и в поперечнополосатых. Однако эти структуры
расположены в гладкомышечной клетке нерегулярно, почему сама эта клетка
(волокно) и не имеет поперечной исчерченности. Гладкие мышцы иннервируются
симпатическими и парасимпатическими нервами, а также метасимпатической нервной
сетью (см. разд. 5.4.3). Однако не все гладкомышечные клетки иннервированы;
многие из них контролируются нервной системой не прямо, а косвенно через другие
гладкомышечные клетки.
Сила сокращения гладких мышц
позвоночных сравнима с силой сокращения (напряжения) поперечнополосатых мышц и
равна 30—40 Н/см2, но скорость сокращения, как уже отмечалось, на
1—2 порядка ниже. Трата энергии гладкими мышцами (при той же силе напряжения) в
100—500 раз меньше, чем у поперечнополосатых мышц. Последнее, видимо, связано с
особой организацией сократительного акта.
Мионевральная передача в гладких
мышцах характеризуется рядом существенных особенностей. В большинстве случаев
она двоякая — возбуждающая и тормозящая. Синаптические окончания формируют
варикозные расширения около пучков мышечных клеток на различном, иногда
значительном (до 1—2 мкм) расстоянии от них. По типу медиатора различаются два
распространенных вида синаптической передачи — холинергическая
(мускариновые рецепторы главным образом в пищеварительном тракте) и адренергическая
(в мышцах мелких кровеносных сосудов — артерий и артериол). Имеются и другие
виды передачи, где природа медиатора не идентифицирована, их называют
«нехолинергической» и «неадренергической» нервно—мышечной передачей.
Сложность
синаптической конструкции обусловливает трудности в трактовке потенциала,
возникающего на иннервируемых клетках. В ответ на стимуляцию некоторых
симпатических и парасимпатических нервов в мышечных клетках отводится
возбуждающий синаптический потенциал (ВСП), представленный мускариновой
холинергической (преимущественно пищеварительный канал), α—адренергической (преимущественно кровеносные сосуды)
передачей и передачей с неидентифицированным медиатором. В гладких мышцах
пищеварительного тракта также отмечена передача возбуждения с метасимпатических
(интрамуральных) нейронов, устойчивая к адрено— и холиноблокаторам. Медиатор
этой передачи неизвестен.
Трудности идентификации медиаторов
усугубляются еще и тем, что одно и то же соединение (например, норадреналин)
может вызывать полярно противоположные эффекты в разных мышцах.
Ряд физиологически активных
соединений (простагландины, гистамин, аденозин, серотонин, пептидные гормоны)
оказывают сильное стимулирующее влияние на гладкие мышцы. Наряду с модулирующим
действием на высвобождение медиатора, не исключено их прямое возбуждающее
влияние на гладкомышечные клетки.
Тормозящая иннервация в гладких
мышцах представлена адренергической (пищеварительный канал), М—холинергической
симпатической передачей (некоторые кровеносные сосуды) и передачей с
неидентифицированным передатчиком, которую часто называют «неадренергической».
Электрическая стимуляция нервных волокон в ряде случаев вызывает появление
тормозящих синаптических потенциалов (ТСП) в виде кратковременной
гиперполяризации мембраны мышечных клеток. Вследствие малой плотности
иннервации одиночные ТСП выражены слабо, и для вызова заметной гиперполяризации
мембраны нужно использовать ритмическое раздражение нервных волокон с частотой
не менее 5—10 имп/с.
Возможно, медиатором
неадренергического торможения гладких мышц пищеварительного тракта является АТФ
или его производные. Эта мионевральная передача эффективно и обратимо
блокируется апамином — полипептидом из пчелиного яда. Однако это неконкурентное
блокирование и происходит не на уровне рецепторов, а в калиевых каналах,
реализующих возникновение ТСП.
1.2.9.
Характеристика некоторых мышц беспозвоночных животных
У беспозвоночных, как и у
позвоночных, существуют поперечнополосатые мышцы, управляющие скелетом
(крыльями, конечностями), а также сердечная и гладкие мышцы, обеспечивающие
работу соответствующих внутренних органов. У кольчатых червей и моллюсков
имеется сходная с поперечнополосатой «косоисчерченная» мускулатура.
Поперечнополосатые мышцы скелета у
беспозвоночных, например у членистоногих, как правило, имеют помимо моторной
(возбуждающей) еще и тормозящую иннервацию. Моторная иннервация мышечного
волокна здесь осуществляется с помощью множества синапсов одного мотонейрона.
Более того, все волокна мышцы могут получать эту иннервацию от одного
мотонейрона, т. е. быть одной нейромоторной единицей («экономия» нервных
элементов).
Иногда имеется два возбуждающих
аксона (нейрона) — быстрый и медленный, различающиеся по силе действия и,
соответственно, по скорости вызываемой мышечной реакции. Тормозная иннервация
также осуществляется множеством синапсов одного нейрона.
Медиатором моторных нервов у раков
и насекомых является L—глутамат, медиатором торможения — ГАМК.
В мышцах конечностей у ракообразных
и насекомых электромеханическая связь и сократительный акт организованы в
основном так же, как у позвоночных. Здесь при активности число одиночных
сокращений равно числу моторных нервных импульсов (и числу ПД мышечного
волокна). Отсюда название всех таких мышц — мышцы синхронного действия.
Наиболее быстрые летательные мышцы
у некоторых насекомых (мухи, шмели, жуки) имеют особую организацию (их иногда
называют фибриллярными, так как миофибриллы здесь чрезвычайно толсты).
Эти мышцы являются мышцами
асинхронного действия. Они производят серию одиночных сокращений с очень
высокой частотой (до 300 в 1 с), значительно (на порядок) превосходящей частоту
порождающих их моторных нервных импульсов и мышечных ПД.
Сокращения относительно слабы (3
Н/см2) и имеют очень небольшую амплитуду (1—3% от длины покоя мышц).
Они вызывают небольшие ритмические деформаций туловищного экзоскелета, что в
силу механических связей туловища и крыльев приводит к махам крыльев с той же
частотой. В силу такой непрямой (опосредованной) связи с крыльями мышцы
асинхронного действия называют также мышцами непрямого действия.
По электрофизиологическим
свойствам асинхронные мышцы принципиально не отличаются от синхронных. Их
ПД, по—видимому, имеют натриевый механизм. Электромеханическая связь здесь
осуществляется с помощью ионов Са2+ Но саркоплазматического
ретикулума в асинхронных мышцах почти нет;
Са2+
поступает в возбужденное волокно извне, причем необходимая концентрация его
удерживается в течение всего периода ритмической активности. Структура
саркомеров асинхронных мышц сходна с описаниями обычных мышц. Особенность ее
состоит лишь в том, что толстые миозиновые нити имеют соединение через
эластический элемент (связку) с Z—мембраной. Это ограничивает колебания длины
саркомеров и делает коротким их I— диск.
Тонкие (актиновые) нити здесь
представлены в большем количестве (три тонких на одну толстую). Показано, что
мостики между толстыми и тонкими нитями в покое асинхронной мышцы направлены
перпендикулярно нитям, а при активации угол между мостиком и толстой нитью
становится острым,
|
|
|
Рис. 1.65 Попеременная
работа активизируемых асинхронных мышц—антагонистов (I, II) Упругие щелчки
экзоскелета (III) попеременно
создают условия растяжения, необходимые для тяги мостиков одной или другой
мышц (объяснение см. в тексте). |
направленным
вершиной к центру саркомера. Предполагают, что это сгибание, или «толчок»,
множества мостиков порождает смещение тонких нитей относительно толстых (к
центру саркомера). Сокращение мышцы, точнее ее одиночное напряжение
(изометрический режим), и приводит к деформации экзоскелета и движению,
например опусканию крыльев. При этом осуществляется переход упругих элементов
экзоскелета из одного состояния в другое «щелчком».
Мышца оказывается освобожденной от
сопротивления и укорачивается примерно на 20 нм (1% длины саркомера). Но в этой
ситуации ее работа почему—то прекращается. Данный феномен (прекращение тяги
при снятии
упругого сопротивления) воспроизводится и на изолированной мышце. Причина его
не выяснена. На рис. 1.65 это явление изображено совершенно условно как
«соскакивание» миозиновой головки с того участка двойной спирали актина, к
которому возможно (или наиболее вероятно) прикрепление.
Дальнейшие события в естественной
обстановке определяются тем, что при новом положении экзоскелета и крыльев до
нужной длины растягивается асинхронная мышца—антагонист. Она тянет в свою
сторону и переводит экзоскелет щелчком в исходное положение (поднимает крылья).
При этом мышца—опускатель крыльев активно включается в работу, а ее
антагонист инактивируется. Так, поочередно растягивая друг друга, эти мышцы,
видимо, и создают высокочастотные ритмические сокращения и, соответственно,
махи крыльев.
Асинхронные
мышцы при активности потребляют значительное количество АТФ, О2 и
существенно нагреваются (температура тела летящего насекомого может подняться
до 40—42°С). При такой работе асинхронных мышц нервные импульсы и порождаемые
ими мышечные ПД нужны лишь для того, чтобы создавать и поддерживать необходимую
для сократительной активности концентрацию Са2+вн. По
прекращении нервной стимуляции и, соответственно, мышечных ПД концентрация Са2+вн
снижается и сократительная активность прекращается.
Есть сведения о том, что
асинхронные мышцы (с частотой сокращений 100/с) имеются и у ракообразных. У
позвоночных такие мышцы не описаны.
Из числа
гладких мышц беспозвоночных животных особый интерес представляет запирательная
мышца двустворчатых моллюсков. Эта мышца относится к так называемым парамиозиновым,
так как в ней много белка парамиозина (он связан с миозином и формирует остов
толстых нитей в мышечных» клетках). Взаимное расположение толстых и тонких
нитей здесь беспорядочно. Мышца активируется холинергическим нервом и
тормозится серотонинергическим. При действии возбуждающего нервного импульса
мышца сокращается и далее остается в достигнутом «укороченном» состоянии
неопределенно долгое время. Такой эффект обозначают как запирательное
действие. Установлено, что сокращение мышцы инициируется ее потенциалом
действия и входом Са2+ в волокно. Но запирательное действие не
сопровождается ПД; потребление Од при нем в 11 раз ниже, чем при сокращении.
Природа запирательного действия не
выяснена. Предполагают, что оно может быть связано либо с формированием
«неразрывной» связи миозиновых головок с актиновыми нитями, либо с
кристаллизацией парамиозина, либо, наконец, с комбинацией этих двух явлений.
При запирательном действии Са2+ и АТФ, по—видимому, оказываются
связанными. Действие тормозного нерва (медиатор — серотонин) снимает запирание
и расслабляет мышцу.
1.2.10. Элементы эволюции
мышц
Эволюцию мышц ранее рассматривали как переход от эпителиально—мышечных
клеток (у древних кишечнополостных) к мускулатуре «гладкого типа», затем к
поперечнополосатой — тонической и фазной. При этом допускалось, что контроль
активности мышц со стороны ЦНС в эволюции нарастал и первичный мышечный
автоматизм, свойственный низшим животным, сначала стал регулируемым со стороны
ЦНС, а далее у локомоторных аппаратов высших животных сменился полным
подчинением мышц нервным импульсам.
Однако в настоящее время такая
простая схема эволюции мышечной иннервации не может считаться верной.
Существуют некоторые факты, противоречащие данной схеме: 1) наличие
миогенного ритма у наиболее быстрых так называемых асинхронных крыловых мышц
насекомых; 2) наличие тонического типа мышечных волокон во внешних глазных
мышцах млекопитающих, т. е. якобы «примитивного» варианта мышечных волокон у
функционально важного двигательного аппарата высших представителей
вторичноротых; 3) наличие свойственной развитым поперечнополосатым мышцам
саркомерной организации миофибрилл в некоторых мышечных клетках примитивных
животных, например медуз.
Есть основания предполагать, что
эволюционными предками мышечных элементов действительно были эпителиальные или
другие «немышечные» клетки. Здесь необходимо заметить, что во всех клетках
немышечной специализации присутствуют миозин и актин, т. е. те
материалы, из которых может быть создан специальный сократительный аппарат.
По—видимому, основные формы мышечных клеток их сократительных аппаратов, а
также основные варианты иннервации мышечных элементов возникли на ранних этапах
эволюции многоклеточных организмов. В дальнейшем они использовались в готовом
виде в тех или иных комбинациях. В позднейшей эволюции всех видов мускулатуры
легко просматриваются усовершенствования на макроуровне архитектоники мышц, но
не изменения элементов. (Напомним, что эволюционным продуктом некоторых
мышечных клеток являются так называемые электрические органы рыб.) В онтогенезе
позвоночных (и беспозвоночных) различные мышцы получаются из разных зачатков,
например у позвоночных скелетные мышцы — из сомитов, гладкие мышцы — из
мезенхимы, а мышцы радужки (определяющие размер зрачка) — из нервного зачатка.
1.2.11. Электрические органы
рыб
Электрические органы рыб — это
эффекторы, специально предназначенные природой для генерации электрических
разрядов. Филогенетически — это производные мышц (иногда желез). Надо заметить,
что уже в четко разделенной на сегменты—метамеры мускулатуре туловища рыбы при
единообразной асимметричной их иннервации существует возможность для сложения
электродвижущих сил этих сегментов по типу ЭДС последовательно соединенных
элементов. Эти условия реализуются, если мышечные сегменты активируются
синхронно
|
|
|
Рис. 1.66 Электрические
импульсы, формируемые в электрических органах рыб А — сложение
ЭДС миотомов у обычных рыб; Б —
работа электрического органа, состоящего из многих сотен электрических
пластинок; В, Г — варианты
электрических импульсов в электрических ячейках у разных рыб: / —
электрический скат (тип «ПКП»), II —
электрический угорь (тип локального ПД), III — нильский сом (тип проводящегося
ПД, который охватывает сначала иннервированную, а далее противоположную
поверхность ячейки). |
(рис.
1.66). Многие рыбы используют эти сигналы для ориентации (улавливают их
изменения своими электрорецепторами).
Специальные электрические органы
рыб — это дальнейшее развитие указанного принципа последовательного соединения
источников ЭДС. Элементом электрического органа является асимметрично
иннервированная клетка. Один слой таких клеток формирует «электрическую
пластинку». Стопка сотен и даже тысяч таких пластинок составляет электрический
орган. Поскольку пластинки активируются нервами (через холинергические синапсы)
асимметрично и соединены последовательно, то при одновременном срабатывании их
ЭДС складываются. При этом получаются суммарные ЭДС в десятки, сотни и даже
тысячу вольт!
У морских «электрических» рыб
(скаты) пластинки электрического органа работают на основе процесса типа ПКП.
При этом 1000 ячеек дают сигнал в виде гигантского ПКП с амплитудой, равной 60
В, и силой тока около 60 А (мощность тока в импульсе 3600 Вт). У пресноводных
электрических рыб (электрический угорь) пластинки генерируют локальный ПД на
одной своей стороне. При этом от нескольких тысяч ячеек получается суммарный
сигнал в форме гигантского ПД с амплитудой 1200 В и силой тока 1,2 А.
Относительно малая сила тока (мощность тока в импульсе 1440 Вт) здесь
согласована с относительно высоким сопротивлением пресной воды.
Особый характер возбуждения
наблюдается у электрических пластинок пресноводного нильского сома. В этих
пластинках ПД возникают последовательно на двух их. сторонах. Поэтому суммарный
«внешний» ПД имеет двухфазную форму (350 В; 0,1 А; мощность тока в импульсе
равна 35 Вт). Электрические рыбы в нормальной для них среде не поражают своими
разрядами самих себя. Последнее объясняется наличием каналов в телах рыб,
шунтирующих их электрические органы, а также конфигурацией рабочего электрического
поля.
1.2.12.
Немышечные формы двигательной активности
Помимо рассматриваемых выше
мышечных сокращений в организмах животных и человека существует множество
других форм двигательной активности. Здесь кроме свойственных практически всем
нормальным эукариотным клеткам внутриклеточных перемещений (сокращений
митохондрий, движений рибосом, перемещений хромосом при митозе и мейозе) могут
быть названы более мощные движения, перемещающие клетки в их среде или
воздействующие на эту среду. Таковы амебоидные движения, т. е. движения
с помощью
псевдоподий
(ложноножек), жгутиков и ресничек. Эти формы движений наблюдаются у простейших
(одноклеточных) организмов и у специализированных клеток многоклеточных
животных.
Например, амебоидные движения,
формирование ложноножки и перетекание протоплазмы в нее присущи амебам и
лейкоцитам высших животных. Жгутиковые движения, т. е. движения
специального выроста клетки — жгутика, служат для перемещения в пространстве у
простейших (жгутиконосцев) и у сперматозоидов высших животных и человека.
Ресничные движения, т. е.
движения специальных выростов клетки — ресничек, наблюдаются у инфузорий как
средство их перемещения в среде, но оно имеет место и у клеток мерцательного
эпителия пищевода лягушки, трахеи, бронхов и маточных (фаллопиевых) труб
млекопитающих. Здесь это движение обеспечивает перемещение жидкости и твердых
частиц в соответствующем направлении.
На рис. 1.67 показаны схемы
ундулирующих движений жгутика (хвоста) сперматозоида и гребных движений
реснички мерцательного эпителия. Гребное движение осуществляется распрямленной
ресничкой, а возвратное — согнутой, что обеспечивает одностороннее перемещение
клетки относительно среды или среды относительно закрепленной клетки и, таким
образом, «обновление» околоклеточного пространства.
Амебоидные, жгутиковые и ресничные
движения — это достаточно сложные и пока мало изученные процессы. По—видимому,
их молекулярная основа подобна молекулярной основе мышечных сокращений. При
всех этих движениях энергия извлекается из АТФ. Во всех случаях действуют
специальные сократительные белки с АТФазной активностью, играют роль ионы Mg2+ и Са2+
При амебоидной локомоции
лейкоцитов, видимо, работает примембранная сеть актомиозиноподобных
микрофиламентов. Она обеспечивает изменения формы мембранного футляра клетки и
перетекание ее протоплазмы в определенном направлении. Тот же механизм
действует при эндоцитозе, обеспечивая впячивание мембраны.
При движениях жгутиков и ресничек
работает их внутренний сократительный аппарат, представленный девятью парами
периферических фибрилл и одной парой центральных. У периферических фибрилл
имеются «ручки». Предполагают, что эти ручки, построенные из белка динеина
(подобного миозину), играют ту же роль, что и миозиновые мостики в мышечном
сокращении: они периодически прикрепляются к соседней фибрилле (ее
актиноподобным участкам) и тянут ее, обеспечивая скольжение данной фибриллы
относительно соседних. Энергию для этого движения дает АТФ. Без АТФ ни жгутики,
ни реснички не работают. Но АТФ здесь, как и в мышце, играет, кроме того, роль
пластификатора. Без АТФ реснички застывают в одном положении.
Существенную роль в этих движениях,
например в движении ресничек, играют ионы Mg2+ и Са2+.
Показано, что у простейших концентрации АТФрд и Mg2+ определяют частоту биения ресничек, тогда как
концентрация Са2+ определяет направление эффективного удара
реснички. Если [Са2+ < 10—7 моль/л, то реснички гребут
к заднему концу тела, перемещая клетку вперед. Однако при воздействии
неблагоприятных факторов среды, снижающих МПП и увеличивающих вход Са2+
в клетку, ситуация изменяется. При [Са2+] > 10—6
моль/л направление эффективного удара ресничек (удара выпрямленной ресничкой)
извращается, и клетка производит попятное движение («бегство»). При попадании в
нормальную среду и откачивании избытка Са2+насосом мембраны
возобновляется движение вперед.
|
|
|
Рис. 1.67 Движения жгутика (хвоста)
сперматозоида (А) и реснички
мерцательного эпителия (Б) |
|
|
|
|
|
Рис. 1.68 Метахрональные волны биения
ресничек, движущиеся вдоль ресничного ряда (картина фиксирована на коротком
отрезке времени) |
У клеток
мерцательных эпителиев многоклеточных организмов реверсии направления
эффективного удара нет, но при росте концентрации Са 2+ происходит
остановка движения ресничек.
Важной
чертой работы мерцательных эпителиев является согласованность,
координированность движения ресничек в пласте клеток — метахрональные волны
(рис. 1.68), что делает гребные движения ресничек высокоэффективными. Механизм
этой координации остается неясным. По—видимому, она основывается на клеточных
взаимодействиях в пласте мерцательного эпителия. Есть также данные о том, что
на мерцательную активность влияют нейромедиаторы (ацетилхолин и др.). Их
действие осуществляется, вероятно, через изменения кальциевой проницаемости
клеток эпителия.
1.3.
ФИЗИОЛОГИЯ СЕКРЕТОРНОЙ КЛЕТКИ
Секрецией называется
комплекс процессов синтеза и/или выведения из клетки синтезированного продукта.
Как механизм регуляции клеточного объема, осмотического давления и выведения
компонентов метаболизма секреция характерна для клеток всех типов.
Эволюционно
самый древний тип секреции — голокриновый — связан с разрушением
клеточной мембраны (вследствие нерегулируемого роста осмотического давления) и
выделением в окружающую среду всех веществ. Необходимость сохранения
целостности клетки и, максимально, клеточной мембраны позднее привела к
возникновению и других типов секреции. Однако голокриновая секреция сохраняется
и у высших позвоночных (например, разрушение тромбоцитов в
тромбоцитарно—фибриновой пробке). Из этого следует важный вывод: выделяемым из
клетки секретом могут быть любые по химической природе вещества. Действительно,
у одноклеточных и многоклеточных эукариот существует секреция белков, пептидов,
углеводов, липидов, АТФ, ионов, газов, феромонов, воды, коллоидов, кислот,
моноаминов, индоламинов, ацетилхолина и т. д. Специализированные для секреции
больших объемов веществ клетки называются секреторными. Тип секрета, его объем
и способ выведения обусловливают особенности структурной организации этой
клетки (рис. 1.69).
К
секреторным клеткам относят в первую очередь клетки экзо— и эндокринных желез,
различные эпителиоциты, производные нейроэктодермы и гепатоциты. Существуют
также переходные типы: например, миоэндокриноциты правого предсердия при
поступлении венозной крови и растяжении его стенки секретируют ряд сердечных
гормонов; или нейросекреторные клетки, которые при синаптической активации
транспортируют и выделяют в кровь или синапс пептиды; нейроэпителиальные
эндокринные клетки трахеи и кишки паракринно или через синаптоподобные контакты
секретируют вещества белковопептидной природы (рис. 1.70, 1.71).
|
|
|
|
Рис. 1.69 Ацинарные секреторные клетки поджелудочной железы А — поперечный срез участка поджелудочной
железы (по данным световой микроскопии), Б — один ацинус (группа клеток, секретирующих пищеварительные
ферменты), В — одна ацинарная
клетка; 1 — плазматическая
мембрана, 2 — митохондрия
(поставляет энергию в форме АТФ), 3 — аминокислоты поступают из крови в
клетку через плазматическую мембрану в результате активного транспорта: к
рибосомам их доставляет тРНК, 4 —
ядро (содержит ДНК, кодирующую различные ферменты, образуемые клеткой); мРНК
выходит из ядра, связывается с рибосомами и инициирует синтез белка, 5 —
шероховатый эндоплазматический
ретикулум (аминокислоты используются для синтеза белков, которые с помощью
своих сигнальных последовательностей связываются с эндоплазматическим ретикулумом
и проинкают в него), 6 —
пузырьки, отделяющиеся от эндоплазматического ретикулума, переносят белки к
аппарату Гольджи, 7 — белки
проходят через аппарат Гольджи, 8 —
секреторная гранула (пузырек Гольджи), отпочковывающаяся от аппарата Гольджи,
9 — зрелая секреторная
гранула содержит концентрированные ферменты в неактивной форме («зимогены»), 10— экзоцитоз(слияние секреторных
гранул с плазматической мембраной и выделение зимогенов в выводной проток), 11 — неактивный фермент (зимоген), 12 — просвет выводного потока. |
|
|
|
|
|
|
Рис. 1.70 Секреторная активность слюнной железы
млекопитающих Ацинарные клетки осуществляют перенос
электролитов из базальных участков в ацинус, а также выделяют путем
экзоцитоза муцин и амилазу. |
|
|
|
|
|
|
|
Рис. 1.71 Функциональная
организация секреторных клеток трех типов А — нейрон; Б — нейросекреторная клетка; В — обычная эндокринная клетка. |
|
|
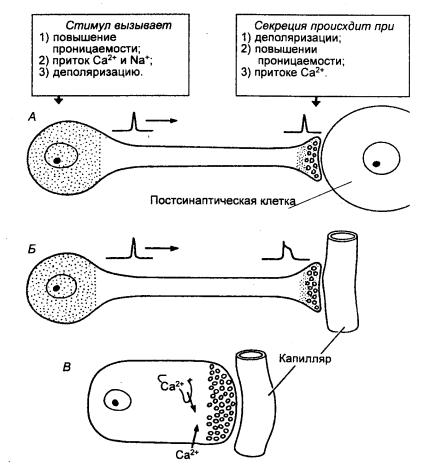
|
|
|
Рис. 1.72 Обобщенная схема организации нейросекреторной
системы. В одних
случаях циркулирующий нейрогормон действует непосредственно на ткань—мишень,
в других — активирует промежуточную эндокринную железу. |
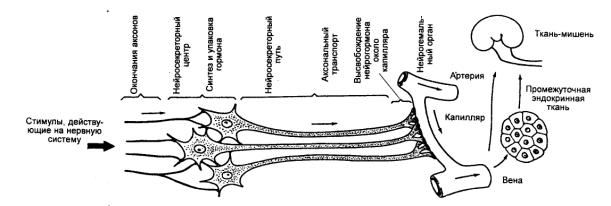
Ускоренная гидродинамика в узких
трубках (отростках клеток, протоках желез, сосудах) обусловила одно из
направлений эволюции секреторной клетки: от суженной «протоковой» части клетки
(одноклеточная субэпителиальная железа ноги брюхоногих моллюсков) до появления
многоклеточных желез с выводными протоками (молочные железы, семенники,
поджелудочная железа) или без них (гипофиз, шишковидная и щитовидная железы),
использующих кровеносные сосуды в качестве дополнительных или основных,
соответственно, путей выведения и «созревания» сложного по составу секрета. Все
это сочетается с другой эволюционной тенденцией: постепенным усложнением
состава секрета и контроля секреторного процесса. Примером может служить
организация нейросекреторной системы, в которой в одних случаях секретирующийся
нейрогормон действует непосредственно на ткань, в других активирует
промежуточную эндокринную железу (рис. 1.72).
Структуры секреторных клеток всех
типов адаптированы к осуществлению трех этапов секреторного процесса:
поступлению предшественников секрета, а также субстратов окисления и
окислителей в клетку; экспрессии генов и синтезу компонентов секрета;
невезикулярному и/или везикулярному выведению секрета из клетки.
1.3.1. Поступление предшественников
секрета в клетку
Предшественники секретируемого
вещества поступают в секреторную клетку благодаря специфическим и неспецифическим
механизмам трансмембранного транспорта и эндоцитоза. Помимо потребностей
секреторного процесса, эти механизмы в разной мере используются для регуляции
объема клетки, осмотического давления, внутриклеточного рН и электрогенеза на
уровне клеточных мембран.
Трансмембранный транспорт. В разных
типах секреторных клеток природа секретируемого вещества обусловливает
поступление в клетку определенных мономеров, субстратов окисления и окислителей
и, соответственно, преобладание в клеточной мембране необходимых транспортеров.
Глюкоза из—за повышенной гидрофильности молекулы переносится через мембрану с
помощью специальных транспортеров Glut (Glucosa transporter).
Эти транспортеры различаются по
числу молекул глюкозы, переносимых за один цикл, чувствительности к лиганду,
активирующему их деятельность, и к Na+ Так,
наиболее распространенный Glut—1
переносит за один рабочий цикл в клетку одну молекулу глюкозы или галактозы,
маннозу, 2—деоксиглюкозу
или
З—О—метилглюкозу по осмотическому градиенту, регулируя внутриклеточное
осмотическое давление и энергетический метаболизм. Транспортер работает Nа+—независимо и активируется многими
гормонами гипофиза с пролиферативной функцией. Инсулин—активируемый Glut—4 транспортирует 4 молекулы глюкозы, a Glut—5 переносит через мембрану фруктозу. В разных участках
мембраны одной клетки могут встраиваться разные транспортеры гексоз.
Глюкоза может поступать в клетку и Na+—зависимо с
помощью котранспортера Na+/глюкоза, а
также через Na+/K+—АТФазу. Сопряженный транспорт натрия и
глюкозы объясняется высокой осмофильностью обоих веществ, что позволяет с
помощью котранспорта быстро гомеостатировать осмотическое давление в клетке, а
для стабилизации этого параметра используется «осмонейтральный» транспорт
веществ через Na+/K+—АТФазу.
Транспорт липидов внеклеточно
осуществляется белками, в том числе и альбуминами. Через клеточную мембрану
жирные кислоты могут поступать диффузионно («flip—flop») (Буквально
— сальто—мортале). При связывании альбумина с его рецептором, встроенным во
внешнюю поверхность мембраны, разобщение жирных кислот и носителя облегчается,
что способствует процессу пассивной диффузии (рис. 1.73).
Поступающие в цитоплазму жирные
кислоты соединяются со специфичными для них транспортными белками. Последние
также могут быть встроены в клеточную мембрану, облегчая сам процесс диффузии
липидов передачей. Внутримембранные транспортеры быстро осуществляют
трансмембранный перенос жирных кислот.
В
цитоплазме многих типов секреторных клеток выделены специфические для разных
классов липидов (фосфолипидов, ретиноидов и др.) транспортеры, переносящие их
между разными компартментами (От англ. compartment —
отделение, отсек)
Однако вопрос об участии таких
транспортеров в переносе соответствующих липидов через клеточную мембрану в
ряде случаев остается открытым. Известно, что липопротеины низкой плотности
плазмы крови могут поступать в клетки эндотелия и путем рецепторного эндоцитоза
(рис. 1.74).
|
|
|
Рис. 1.73 Системы
трансмембранного переноса липидов А — облегченная диффузия при взаимодействии
носителя (альбумина — АЛБ) жирных кислот с его рецептором (Ралб) или (Б) с
белком, связывающим жирные кислоты (ЖК—СБ); В — внутримембранный транспортер,
связывающий внеклеточно носитель жирных кислот, а внутриклеточно — ЖК—СБ. |
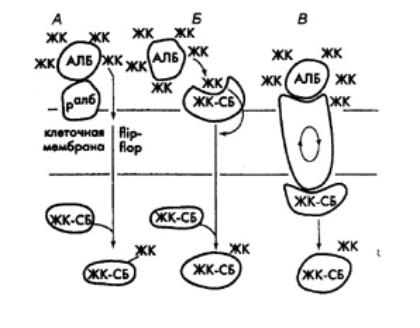
|
|
|
Рис. 1.74 Схема образования и
судьбы секреторных гранул, согласно которой после образования в аппарате
Гольджи секреторные гранулы (пузырьки) транспортируются к месту выделения После
экзоцитоза могут образовываться новые пузырьки путем эндоцитоза, возможно, за
счет использования той же мембраны, из которой состояли первые пузырьки. 1 — аппарат Гольджи, 2 — цистерны Гольджи, 3 —
конденсирующая вакуоль, 4 —
секреторная гранула, 5 — экзоцитоз, в
— эндоцитоз, 7 — окаймленные пузырьки, 8 — гладкие микропузырьки, 9— лизосома 10—
гранулярный эндоплазматический ретикулум. |
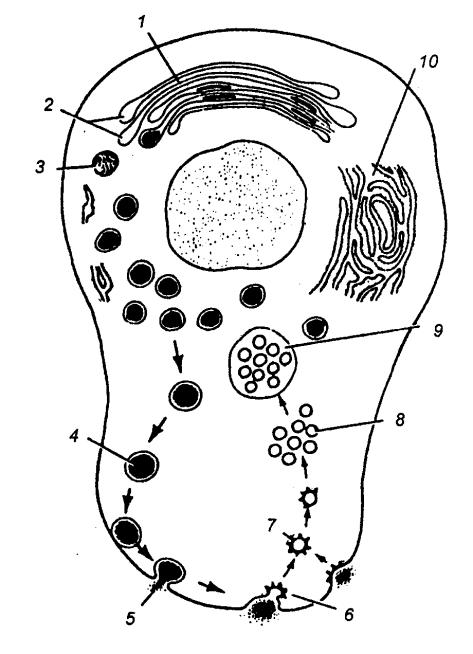
|
|
|
Рис. 1.75 Переносчики основных
нейротрансмиттеров в мембране нейрона
|
|
|
|
Рис. 1.76 Механизм секреции электролитов клетками поджелудочной железы |
Аминокислоты
в соответствии с основной, кислотной или амфифильной структурой молекул
транспортируются через мембрану специфическими типами транспортеров,
работающими Nа+—зависимо
или независимо, а также через поры некоторых помп. Так, представители ЕААС—1 (Exitatory Amine Acid
Carrier—1)
семейства высокоаффинных Na+/K+—зависимых транспортеров
глутамина и аспарагина выделены в клеточной мембране нейронов, энтероцитов
кишки, гепатоцитов, в сердце и легких. Сходные транспортеры для глутамина
описаны в глиоцитах (GLAST, GLT—1). Другое суперсемейство для транспортеров
нейтральных и двуосновных аминокислот включает Nа+/зависимые и Na+/—независимые
переносчики. Одним из них является D2 для
цистеина. Апо—липопротеин В—100 (ароВ—100) осуществляет транспорт основных аминокислот
лизина и аргинина и других веществ. В поступлении в клетку пептидов, белков и
других веществ участвуют различные АВС—АТФазы (ATP—Binding
Cassette transporting proteins). В настоящее время у про— и эукариот описано более 100
АВС—помп, имеющих высококонсервативную доменную (От франц. domaine — владение, область, сфера).
организацию (области однородной среды,
отличающиеся упорядоченностью в расположении или ориентации частиц) и большую
гомологию молекулярных структур. Во многих случаях показано, что они сочетают
свойства транспортера и канала, поскольку через образуемую субъединицами пору в
клетку и из нее могут проходить различные вещества. В их числе Сl—,
тяжелые металлы, сахара, антиканцерогены, олигопептиды и белки. Среди помп
существует определенная «специализация»: RING 4—11 осуществляет АТФ—зависимый транспорт пептидов, MDRP3 — наркотических веществ, MDRP1 — органических веществ и ионов хлора. В настоящее время
эти транспортеры — предмет пристального внимания ученых, поскольку мутации
генов некоторых из них приводят к тяжелым патологиям.
Специфические
транспортеры трансмиттеров (медиаторов), обеспечивающие их возврат в
пресинаптическое окончание нейрита, описаны для ГАМК, дофамина, норадреналина,
серотонина (рис. 1.75). Локализованы они также в клеточной и везикулярных
мембранах хромаффинных и других секреторных
клеток, где
способствуют накоплению выводимых веществ в экзоцитозных пузырьках в обмен на
выход Н+. Все они являются интегральными белками с 12
трансмембранными доменами и работают Na+— и С1——зависимо,
что указывает на их осмочувствительность.
В целом
направленность переноса органических веществ определяется трансмембранными
электрохимическими градиентами Na+ (K+ у
беспозвоночных) и Н+. На апикальной мембране поляризованных
эпителиальных клеток градиент Na+ направленный
в клетку, создается благодаря работе Nа+/К+—АТФаз
базолатеральной мембраны, выводящих ионы. Затем включаются Na—зависимые
вторичные транспортеры. Преобладание К—зависимого транспорта и электрогенеза у
насекомых, по сравнению с преимущественно Na—зависимостью процессов у
позвоночных, может иметь эволюционное значение в силу большей химической
активности Na+ по
сравнению с К+. Электрохимический градиент H+ на уровне плазмалеммы и внутриклеточных мембран
фагоцитов, остеокластов и многих «богатых митохондриями» эпителиальных клеток
животных создается Н+/АТФазами. Это способствует запуску различных
транспортеров, в том числе и Nа+/независимых (рис. 1.76).
Эндоцитоз. В
секреторную клетку вещества могут поступать одномоментно в больших, чем это
могут обеспечить обменники, помпы и каналы, количествах, используя эндоцитоз.
Известны два основных механизма эндоцитоза:
неспецифический жидкофазный и рецепторный.
Жидкофазный эндоцитоз
представлен макро— и микропиноцитозом, усиленной диффузией. Наиболее часто
жидкофазный эндоцитоз используется в условиях гиперосмолярности внеклеточной
среды, вызывающей выход воды из клетки и значительное уменьшение ее объема.
Поступление значимых объемов воды или осмотически активных веществ в процессе
жидкофазного эндоцитоза можно рассматривать как механизм быстрой коррекции
трансмембранного осмотического градиента (вплоть до изоосмотичности) и
восстановления объёма клетки.
Рецепторный эндоцитоз
регулируется преимущественно внеклеточным сигналом (лигандом) и имеет ряд
отличий от жидкофазного эндоцитоза. Так, рецепторный эндоцитоз характеризуется
селективностью веществ, поступающих в клетку, специфика которых определяется
самой клеткой через синтезируемые в ней рецепторы клеточной мембраны. Кроме
того, меньшие объемы веществ, поступающие в клетку, по сравнению, например, с
макропиноцитозом, предопределяют большую роль направленной внутриклеточной
сортировки входящих молекул и расширение круга их функций.
Различают следующие стадии
рецепторного эндоцитоза: 1) связывание рецептора с лигандом; 2) образование
«опушенных» клатриновых везикул; 3) ацидификация в эндосомах и преобразования
лигандрецепторных комплексов;
4)
сортировка эндоцитосом. Детально стадии рецепторного эндоцитоза были
исследованы для рецепторов факторов роста, обладающих внутриклеточными доменами
с протеинкиназной активностью. Считается, что только такие рецепторы, способные
к аутофосфорилированию и фосфорилированию друг друга после связывания с
молекулами лиганда (эпидермального фактора роста, например), участвуют в
рецепторном эндоцитозе. Благодаря латеральной диффузии эти рецепторы
скапливаются в складках клеточной мембраны, образуя рецепторные комплексы. Этим
облегчается процесс их взаимного фосфорилирования после активации лигандом.
Благодаря этому рецептор фосфорилирует по остаткам тирозина связанные с ним
примембранные, эволюционно весьма консервативные, белки—адапторы (рис. 1.77).
Последние фосфорилируют
|
|
|
Рис. 1.77 Образование эндоцитосомы А — структура адаптера плазмалеммы (α— и β—субъединицы тяжелой цепи). Б — интернализация
лиганд—рецепторных комплексов с помощью адапторов и клатрина: 1 — рецептор, 2 — адаптер, 3 — клатрин.
Заштрихованы субъединицы легкой цепи. |
ассоциированные
с ними молекулы клатрина, тяжелые цепи которого представляют собой треногу. Это
позволяет клатрину одновременно быть связанным с белком—адаптером, с
ГТФ/ГДФ—связывающим белком динамином и белком теплового шока hsp 70. Молекула динамина на N—конце имеет 4 сайта (от англ. site — участок), связывания ГТФ, а на С—терминале — 3 сайта с остатками пролина,
которые связываются с микротрубочками цитоскелета. Это облегчает
транспортировку образовавшейся эндоцитосомы в аппарат Гольджи или к ядру с
помощью hsp 70, присоединяющемуся к N—ацетилгликозаминовому сайту клатрина.
Примембранный ацидоз способствует сборке клатриновой сетки эндосомы и, тем
самым, рецепторному эндоцитозу.
По мере
продвижения эндоцитосомы в ее мембрану встраиваются другие мономерные
α—ГТФазы, обеспечивающие энергетику транспорта. Система за—кисления
эндоцитосомы осуществляется Н+/АТФазой (в энтероцитах Н+—К+—АТФазой)
и лизосомальной кислой фосфатазой, перешедшими в её мембрану с участком
плазмалеммы. Поддерживает рН в эндосоме не ниже определенного уровня система
буферирования, представленная встраивающимися в мембрану Ca+—Mg+—АТФазой
и Са+—H+— обменником.
Ацидификация
внеклеточного пространства у кавеолы является основным условием интернализации
лиганд—рецепторных комплексов (и токсинов), а внутри эндоцитосомы — причиной их
протеолиза. Возможны разные варианты в дальнейшем.
1. В ранних
эндоцитосомах лиганд фрагментируется и поступает в цитоплазму, а рецептор
возвращается в плазмалемму, где может подвергаться повторному эндоцитозу
(ретроэндоцитоз) многократно, выполняя функцию шаттл—белка (от англ. — shuttle — челнок).
Ретроэндоцитоз рецептора может сочетаться с транспортом целой молекулы лиганда
в ядро в том случае, когда она имеет соответствующую сигнальную
последовательность остатков аминокислот (например, пролактин в гепатоцитах).
2. При
высокой концентрации лиганд—рецепторных комплексов лиганды в эндосоме также
фрагментируются, а рецептор транспортируется к ядру, где способствует
подавлению экспрессии собственного гена (генов), адаптируя число рецепторов к
функциональному состоянию клетки.
3. В
средних и, возможно, поздних эндоцитосомах, образующихся после слияния с
лизосомами, протеолизу подвергаются и лиганд, и рецептор, — их фрагменты
поступают в цитоплазму и/или ядро. Если слияние эндосомы с лизосомой произошло
в аппарате Гольджи, тогда фрагменты лиганда могут использоваться в процессе
сборки в цистернах Гольджи молекул секретируемого вещества и образования
экзоцитозных везикул.
4.
Эндоцитосома проходит путь от апикальной до базальной мембраны секреторной
клетки (трансцитоз), лиганд—рецепторный комплекс протеолизу не подвергается, и
лиганд выделяется. Возможен и ретроэндоцитоз такого комплекса без трансцитоза,
тогда увеличивается доля примембранных эффектов.
Таким образом, для рецепторного
эндоцитоза, в отличие от жидкофазного, регуляция внутриклеточного осмотического
давления и объема клетки не является основной задачей.
Рецепторный эндоцитоз может
способствовать ускорению и пролонгированию эффектов Внеклеточного лиганда на
внутриклеточные структуры. Фрагменты лиганда могут использоваться для
ускоренного синтеза секретируемого вещества или для интенсификации
внутриклеточного метаболизма.
Регуляция и функции
внутриклеточного рН. Значения внутриклеточного рН как интегрального
показателя кислотно—щелочного равновесия играют большую роль в регуляции всех
стадий секреторного процесса. Впервые зависимость внутриклеточного метаболизма
и трансмембранного транспорта от градиента рН выявил Г. Сёренсен. Будучи
специалистом в области электрохимии, он определил рН как отрицательный логарифм
термодинамической активности протона: рН = —logH+. Г. Сёренсен впервые доказал, что
рН отражает интегральную оценку обмена веществ и энергии в клетке. При этом кислоты
и щелочи выступают в ролях соответственно доноров и акцепторов H+.
В клетке чаще источником протона являются органические вещества (например,
кислые аминокислоты, пептиды и белки). Разные клетки характеризуются
специфическими базальными значениями рН. Так, в нейронах, в силу участия ионов
щелочных металлов в электрогенезе, рН более щелочная (до 7,3), а в
фагоцитирующих клетках — более кислая (до 6,5). В разных структурах одной
клетки рН также может различаться: в большинстве клеток в митохондриях рН >
7, в аппарате Гольджи от 2 до 5, в лизосомах рН = 2, эндосомах рН =0,5—1,0 и
фагосомах — 3—5 при рН > 5 для цитоплазмы. Поэтому органеллы с ацидозом
рассматривают как депо Н+. Очевидно, что функциональное состояние
клетки, в том числе и стадия секреторного процесса, могут обусловливать
изменения рН и быть одновременно рН—зависимыми. На первой стадии секреторного
процесса на значения рН может влиять трансмембранный транспорт воды и ионов.
Регуляция рН в секреторной клетке:
транспорт воды. Направление трансмембранного транспорта воды
(гидравлический градиент) противоположно подобному для осмотического градиента.
Перенос молекул воды может быть диффузным или осуществляться через водные поры
(каналы) с регулируемой проницаемостью для воды (рис. 1.78). Диффузия воды
облегчена в участках клеточной мембраны, насыщенных анионными фосфолипидами,
неполярные концы молекул которых расположены под углом друг к другу. Это
увеличивает межмолекулярные пространства в мембране, через которые диффундирует
вода.
|
|
|
Рис. 1.78 Движение воды и электролитов через
межклеточное пространство |
Водные поры образованы белками аквапоринами,
образующими гомотетрамер с каналом в центре. Для аквапорина—2 в люминальной (от лат. lumen, luminis — свет,
просвет)
(обращенной в полость органа) мембране
эпителия мочевого пузыря амфибий и почечных канальцев млекопитающих показана
способность связывать антидиуретический гормон (вазопрессин), что приводит к
увеличению водной проницаемости и реабсорбции воды.
В мембране и
по обе стороны от нее молекулы воды образуют гидратные оболочки ионов и
органических молекул. Так, ионы натрия имеют три гидратные оболочки, хлора —
две, а калия — одну, чем объясняется разная степень их влияния на
внутриклеточные значения рН, осмотическое давление и соответствующие
трансмембранные градиенты. Большая «гидратная агрессивность» ионов натрия, чем
калия, определяет асимметрию их распределения по обе стороны клеточной
мембраны: в клетке больше ионов калия, а во внеклеточном пространстве — натрия.
Гидрофильные участки белков, пептидов и более сложных органических веществ
также связывают воду. Однако в районе гидрофобных последовательностей молекул
отталкиваемые молекулы воды образуют комплексы на определенном расстоянии от
этого участка белка. В целом такой зеркальный «гидратный портрет—слепок»
органической молекулы может играть важную роль в межмолекулярных
взаимодействиях в мембране и примембранных пространствах, особенно в механизмах
трансмембранного переноса по рН— и осмотическому градиентам.
Транспорт
ионов: обменники, каналы, помпы. Частичный гидролиз воды в клетке с
образованием Н+ и ОН— обусловливает влияние
трансмембранного переноса воды на регуляцию рН цитоплазмы и, через
протонирование и гидроксилирование органических молекул, на изменение свойств
последних. Повышенная гидрофильность ряда катионов сопряжена также с их ролью в
трансмембранном переносе протонов. Так, с помощью Na+/K+ обменника,
изоформы которого присутствуют в мембранах клеток всех живых организмов,
начиная с бактерий, осуществляется разнонаправленный перенос иона натрия в
обмен на протон (рис. 1.79). Энергетически он возможен благодаря наличию
концентрационного градиента ионов, поэтому зависит от потенциала мембраны.
Однако сами обменники представляют собой неэлектрогенные переносчики. Постоянно
активный, изменяя лишь число циклов в единицу времени, Na+/H+ обменник
быстро корректирует величины рН и осмотического давления по обе стороны
мембраны. У млекопитающих натрий в обменнике может быть заменен Са2+
или К+.
Для регуляции
рН в секреторной клетке особое значение имеет Са2+ как основной
буфер ацидоза. Поэтому обменники Ca2+/H+, Са2+/2Н+
наиболее распространены в мембранах органелл — депо H+. При
защелачивании цитоплазмы H+ выкачивается из депо в обмен на
Са2+. Таким образом они превращаются перманентно в депо для Са2+.
В регуляции
трансмембранных градиентов рН участвуют также обменники (рис. 1.80),
переносящие катионы в обмен на анион (Nа+/НСОз—, 2Cl—/Ca2+),
катиона на катион (Na+/Ca2+) или
аниона на анион (Сl—/НСОз—). Возможен и однонаправленный
транспорт ионов (симпорт, или котранспорт). В секреторных клетках представлены
котранспортеры 2Cl—/Na+/K+, Nа+/НСОз—,
Nа+/глюкоза и Nа+/лактат. Подчеркнем, что в обоих случаях
(симпорт или антипорт) движение ионов происходит по концентрационному
градиенту, электронейтрально и АТФ—независимо.
|
|
|
Рис. 1.79 Транспортные процессы в
проксимальном извитом канальце Ионные
насосы показаны кругами и сплошными стрелками, межклеточный транспорт —
штриховыми стрелками, субстрат — S*. |
|
|
|
Рис. 1.80 Секреция обкладочными клетками желудка соляной
кислоты, с активным транспортом ионов H+ и Сl— через
апикальную мембрану в просвет органа |
Через каналы транспорт ионов осуществляется
также по концентрационному градиенту и АТФ—независимо, но электрогенно. В
секреторных клетках описано несколько типов катионных и анионных каналов,
образуемых одним или несколькими интегральными белками, формирующими пору
канала. Проницаемость каналов регулируется благодаря селективной (или
смешанной) чувствительности этих белков к химическим, механическим факторам или
к изменению потенциала мембраны.
К хемочувствительным относят
ионные каналы, имеющие участки связывания гормонов или трансмиттеров
(локализованные внеклеточно), H+ или Са2+ (внутриклеточно).
Классическим примером является мономерный ГАМКa—рецептор клеточной мембраны, который после связывания
молекулы ГАМК превращается в канал для С1—, входящего в клетку по
концентрационному градиенту и гиперполяризующего мембрану. В мембране
саркоплазматического ретикулума скелетных мышц локализован один из каналов для
Са2+ обладающий рецепцией к риноидину. Для связывания лиганда белки
канала должны предварительно связать ионы кальция. Этот риноидин— и
кальций—чувствительный канал для Са2+ относится к широко
представленной в секреторных клетках большой группе кальций—чувствительных
ионных каналов для Na+, K+, Сl—, Са2+ Связывание ионов кальция в клетке
определяет также роль белков этих ионных каналов в гомеостатировании
внутриклеточного Са2+. Для рН—чувствительных ионных каналов
характерно протонирование при внутриклеточном ацидозе участков молекул.
Например, в этих услових запускается вход Na+ через Nа+/рН—чувствительные каналы, что
способствует гомеостатированию рН цитоплазмы. Регуляция хемочувствительных
ионных каналов может быть и опосредованной через структуры, активируемые
связыванием рецептора с лигандом (например, ГТФ/ГДФ—связывающих белков).
Механочувствительные ионные
каналы открываются при изменении степени натяжения клеточной мембраны. В
секреторных клетках механочувствительные каналы для Са2+, Na+ Cl— участвуют
в регуляции объема клетки
|
|
|
Рис. 1.81 Секреция НСl
обкладочной клеткой желудка: ионы Н+ переносятся в просвет органа при
участии (H+/K+
)—АТФазы, встроенной в мембрану щеточной каймы. Ионы Сl— также
активно переносятся в просвет, а в клетку поступают в обмен на ионы НСО3;ионы.
Н+ образуются из Н2СО3 и в меньшей степени,
из воды |
и секреции.
Примером может служить секреция атриального натрийуретического гормона
миоэндокриноцитами ушек правого предсердия млекопитающих при его растяжении
венозной кровью.
Потенциал—чувствительные каналы для
всех ионов имеют гомологичный четвертый внутримембранный домен (S4) интегрального белка канала, связанный с механизмом
открывания его ворот. Для S4 характерно присутствие заряженных и незаряженных
участков. Предполагается, что при деполяризации мембраны последние приобретают
положительный заряд, что является критическим для открывания
потенциалчувствительных каналов, участвующих в генезе потенциала действия и
выведении секрета. Заметим, что разные подтипы каналов могут открываться при
разных значениях потенциала мембраны. Например, медленные каналы для К+
открываются при критических для генерации ПД значениях деполяризационного
потенциала, другие, также выходящие, открываются при максимальной следовой
гиперполяризации мембраны и закрываются по достижении КУД. В клетках
пейсмекерного типа (водители ритма сердца, ЦНС, нейросекреторные клетки) такие
каналы обеспечивают спонтанную повторяющуюся генерацию ПД. Это весьма важно для
выведения больших количеств секрета белково—пептидной природы при запуске
механизма «стимул—секреция».
Химические факторы могут
регулировать проницаемость и потенциал—чувствительных ионных каналов. Так,
жирные кислоты, особенно ненасыщенные, снижают проницаемость деполяризующих
потенциал—зависимых Na+— и Са2+
каналов и увеличивают — входящих и гиперполяризующих мембрану
потенциал—чувствительных К+/каналов.
Движение ионов против градиента
концентрации требует энергетических затрат, на которые идет энергия,
выделяющаяся при расщеплении молекул АТФ. С этим связано наличие энзиматических
свойств у молекул транспортеров или помп (рис. 1.81). Среди них наиболее
известна Nа+/К+—АТФаза, относящаяся к α/β
гетеродимерным катион—обменным АТФазам (помпы Р—типа, как и Н+/К+—АТФаза).
Она состоит из α— и β—субъединиц и обладает способностью присоединять и
расщеплять АТФ, акцептировать и переносить катионы и ряд других веществ. На
вынос 3Na+ из клетки
и перенос 2K+ в клетку затрачивается 1 моль АТФ. Работая в базальном
режиме, Nа+/К+—АТФаза поддерживает асимметрию катионов по
обе стороны плазмалеммы. Когда она нарушается (например, во время генерации восходящей
фазы ПД и следовой деполяризации), помпа активируется (в период следовой
гиперполяризации) и восстанавливает соотношение катионов. В поляризованных
секреторных клетках Nа+/Н+—обменник и Na+—каналы
локализованы преимущественно в
|
|
|
Рис. 1.82 Зависимость пассивного переноса
ионов от размера пор плотных контактов |
апикальной
мембране, а Na+/K+—АТФаза — в базальной. Это способствует
поддержанию низкого уровня ионов натрия в клетке и, тем самым, созданию
электрохимического градиента Na+ на апикальной
мембране. В плазмалемме и в мембранах внутриклеточных структур секреторных
клеток описаны и другие помпы:
Н+/К+—,
Н+—, Ca2+—Mg2+—, 2H+/Ca2+—
и I——АТФазы.
Среди них наиболее эволюционно древней считается протонная помпа, которая у
гриба нейроспоры выкачивает протон из клетки, создавая мембранный потенциал в
200 мВ. У галобактерий гомологом Н+—АТФазы является галофильный
белок, гомологичный родопсину. Он также способствует выходу протонов.
Протон—секретирующие клетки широко представлены у разных групп животных (рис.
1.82).
Для секреторной клетки описанные
механизмы транспорта ионов имеют особое значение. Сопряженно с переносом в
клетку натрия активируется перенос глюкозы и ряда аминокислот. Через пору,
образуемую субъединицами Nа+/К+—АТФазы, в клетку
поступают глюкоза, аминокислоты и до 40% всего объема кислорода, попадающего в
клетку извне. Таким образом, предшественники—мономеры синтезируемого белка,
субстрат окисления и окислитель, обеспечивающие энергетику синтеза и работу
самой помпы, попадают в клетку сопряженно с транспортом ионов. Пассивный
перенос через эпителий зависит также от размера пор плотных межклеточных
контактов, который, например, уменьшается в направлении от проксимальных
отделов кишки к дистальным, в связи с чем в том же направлении увеличиваются
трансэпителиальная разность потенциалов и электрическое сопротивление (рис.
1.83). Очевидно, что деятельность определенных механизмов, регулирующих рН,
обеспечивает локальные трансмембранные градиенты рН и определяет локальные же
значения рН в том или ином участке цитоплазмы. В эпителиальных тканях большое
значение имеет и трансэпителиальный градиент рН. Указанные градиенты рН влияют
на трансмембранный, трансцеллюлярный и трансэпителиальный ток жидкости.
Процессы протонирования, депротонирования, гидроксилирования белков
внеклеточного матрикса, плазмалеммы и внутриклеточных белков отражают значение
для функций секреторной клетки локальных изменений рН и трансмембранных
градиентов. Изменяется активность ферментов и аффинность рецепторных доменов в
составе внеклеточного матрикса. Нейтральные околоклеточные примембранные
значения рН блокируют эндоцитоз и обрекают лиганд—рецепторные комплексы на
долгое пребывание на уровне плазмалеммы. При рН < 5 наблюдаются
деполяризация мембраны и эндоцитоз, а при рН > 5 гиперполяризация
сопровождается сбрасыванием лиганд—рецепторных комплексов с клеточной
поверхности.
|
|
|
Рис. 1.83 Структура обкладочной
клетки в покое (А) и при стимуляции (Б) Я — ядро,
Р — гладкий плазматический ретикулум, М — митохондрия, К — внутриклеточный
каналец, открывающийся в просвет железы, В — вакуоль. |
Проницаемость
ряда ионных каналов и, соответственно, мембранный потенциал также изменяются
рН—зависимо и, с другой стороны, являются механизмом регуляции рН. Так,
защелачивание внеклеточного примембранного пространства от 6,7 до 8,3 приводит
к увеличению выхода Сl— из обкладочных клеток слизистой оболочки
желудка в 5 раз. Обратный процесс (рН снижается от 7,9 до 6,7) приводит к
модификации Са—каналов в Na—каналы. В седалищном нерве лягушки на восходящей
фазе ПД, обусловленной лавинообразным входом Na+ развивается алкалоз(от
позднелат. alkali — щелочь,
от араб. al—gali —растительная зола и греч. —osis — суффикс, означающий
«процесс», «болезнь»). рН от 6,7 возрастает до 8,3 к пику. Максимально
открытые Nа+,
каналы позволяют протонам входить по градиенту рН. На нисходящей фазе
активируется Nа+/Н+обменник, также вносящий протоны.
Поскольку алкалоз—зависимо открываются Cl—каналы в начале фазы следовой
гиперполяризации, то вход протонов и анионов способствует компенсаторной
нейтрализации вплоть до 6,2.
Активация Na+/K+—помпы
благодаря входу глюкозы и кислорода стимулирует процессы окисления на этой
стадии и восстановление энергетического потенциала. В окситоцинергических
нейросекреторных клетках гипоталамуса выведение секрета сопряжено с большими
энергетическими затратами: на фоне длительного Са—зависимого деполяризационного
плато возникают высокочастотные «залповые» ПД, сменяющиеся длительной (до 20 с)
следовой гиперполяризацией. Сходная картина электрогенеза характерна и для
инсулин—секретирующих (β—клеток
поджелудочной железы.
Внутриклеточный алкалоз стимулирует
вход йодидов в фолликулярные клетки щитовидной железы с последующим синтезом
йод—содержащих гормонов. Ацидоз, усиливая выход ионов кальция из
внутриклеточных депо, активирует Са—зависимые процессы: сокращение,
хемотаксисы, Са—зависимый экзоцитоз, клеточный цикл, адгезию. Известно, что
увеличение внутриклеточного Са2+ стимулирует синтез основного
Са—связывающего белка кальмодулина (СаМ). При увеличении рН на 0,5 синтез СаМ
увеличивается под влиянием Са2+ в 5 раз. Поэтому комплексы Са—СаМ и
H+ рассматриваются как сенсоры внутриклеточного рН и Са2+.
Регуляция внутриклеточного рН
благодаря процессам трансмембранного транспорта воды, ионов, органических
веществ, клеточного дыхания и метаболизма сопряжена с регуляцией осмотического
давления и объема клетки, особенно секреторной.
Регуляция объема секреторной клетки. В
эпителиальных, особенно поляризованных, клетках изоосмотичность цитоплазмы
внеклеточной среды поддерживается благодаря равенству объемов и скоростей воды,
поступающей в клетку через апикальную мембрану и покидающей ее через базальную.
Нарушение этого равновесия может привести к увеличению или уменьшению объема
клетки и изменению ее функций вплоть до гибели. Направление гидравлического
градиента и объем свободной воды в клетке определяются концентрацией
связывающих молекулы воды осмотически активных ионов (Na+, С—, K+, Са2+)
и органических веществ, т. е. осмотическим градиентом. К органическим
осмолитикам относятся: глюкоза, простые липиды и ненасыщеные жирные кислоты,
полигидратные алкоголи, лактат, кислые и нейтральные аминокислоты и их
нитрогенные растворы, пептиды и другие вещества, образующиеся в процессе
транспорта, синтеза и метаболизма.
В роли «сенсоров» изменения объема
клетки могут выступать: рост или уменьшение гидратации белков мембраны и
цитоплазмы; растяжение или сжатие клеточной мембраны, вызывающее перестройки
цитоскелета, активацию или ингибирование ассоциированных с мембраной энзимов
(например, аденилатциклазы), транспортеров, рецепторов и ионных каналов;
изменение градиентов ионов (ионной силы), осмотического давления и рН (осмохимическая
сила); де— или гиперполяризация клеточной мембраны (рис. 1.84).
При возникновении трансмембранного
осмотического градиента, приводящего к изменениям объема клетки, запускаются
механизмы регуляции, направленные на достижение изоосмотичности вне— и внутриклеточных
сред, что приводит к нормализации объема. Этой задаче служит перенос воды
гидрофильными ионами (наиболее быстрый механизм регуляции I типа), а также
компенсаторные (замедленные) изменения концентраций органических осмолитиков
через их трансмембранный транспорт, метаболизм, эндо— или экзоцитоз (П типа).
При этом механизмы регуляции объема клетки должны избегать «побочных»
энергозатрат на электрогенез и рН—стабилизацию.
Оба типа регуляции используются при
регулируемом уменьшении объема клетки (РУМО), раздувшейся в условиях
гипоосмолярной среды из—за входа воды, и регулируемом увеличении (РУВО) объема
клетки, сжавшейся в гиперосмолярной среде из—за потери воды. Рассмотрим
особенности каждого из них.
Регулируемое увеличение объема
клетки. По мере уменьшения размеров и гидратированности клетки
срабатывают механизмы РУВО I, главным компонентом действия которых является
вход Na+, CL— и K+.
Трансмембранный перенос в клетку осмолитиков — предшественников секрета,
эндоцитоз и
|
|
|
Рис. 1.84 Системы регулируемого
уменьшения (РУМО I, РУМО II) и увеличения (РУВО I, II) объемов секреторной
клетки |
протеолиз
содержимого эндосом способствуют увеличению внутриклеточного осмотического
давления, удерживанию воды в клетке и восстановлению нормального объема.
При гиперосмолярности среды
уменьшению объема клеток почечного эпителия позвоночных противодействует
накопление сорбитола, глицерофосфата, бетаина, инозитола, таурина, глицина и
глутамина. В церебральных нейронах млекопитающих объем и внутриклеточное
осмотическое давление регулируются быстрым входом неорганических ионов и
низкомолекулярных органических осмолитиков: холина, метиламинов, креатина,
инозитола, таурина, нейтральных и анионных аминокислот, ГАМК. Сходные механизмы
описаны и в эпителии жабер двустворчатых моллюсков.
Регулируемое уменьшение объема
клетки. Механизмы РУМО I используются в эпителиальных клетках,
подключая все более сложные варианты по мере увеличения объема. Различают
Са—независимые системы РУВО I и Са—зависимые. Первые описаны для эпителия
почечных канальцев и включаются через активацию переносчика K+/Cl—, который при нормальном объеме фосфорилирован и
неактивен. Увеличение объема подавляет активность протеинкиназ и активирует
дефосфорилазы с последующим дефосфорилированием и стимуляцией переносчика. Это
стимулирует выход ионов, а вместе с ними воды. Увеличение концентрации Glu, Asp, синтеза
фосфолипидов и гликогена (РУМО II) приводит к уменьшению осмотического
градиента и нормализации объема клетки.
Са—зависимые системы РУМО I
включают механочувствительные Са2+— и Са—чувствительные К+
и Сl——каналы:
натяжение плазмалеммы при увеличении клеточного объема активирует первые. Через
них в клетку поступает Са2+, который акцептируется белками
Са—чувствительных каналов. Выходящие ионы К+ и Сl— выводят с собой воду, что
нормализует объем.
Хлорный канал относится к типу
максиСl——канала,
время открытого состояния которого максимально по сравнению с другими типами
хлорных каналов. Через него из клетки может выходить вода, продукты анаэробного
гликолиза и НСОз—. Последовательность включения ионных токов
обусловливает смену значений потенциала мембраны: первичная С2+—зависимая
деполяризация сменяется K+ и Сl——зависимой гиперполяризацией. Показано, что при
деполяризации в начале РУМО I макси С1——каналы инактивированы, а
позже ненасыщенные жирные кислоты (факторы гиперполяризации) активируют их. В
зависимости от степени увеличения объема клетки для их коррекции используются
разные механизмы.
С локальной деполяризацией сопряжен
эндоцитоз, а с гиперполяризацией — выведение экзоцитозом или транспортерами
алифатических аминокислот, холина, миоинозитола, метиламинов, что снижает
внутриклеточное осмотическое давление и поступление воды. Этот механизм РУМО II
описан для нейронов головного мозга.
1.3.2. Выведение веществ из
клетки
Выведение веществ из клетки
представляет собой, с одной стороны, завершающую стадию секреторного процесса,
с другой — механизм экстренного и эффективного уменьшения объема клетки,
внутриклеточного осмотического давления и рН. Различают конститутивный и
регулируемый экзоцитоз.
Конститутивный экзоцитоз
осуществляется периодически, по мере накоплениях секрета, без видимого
воздействия внеклеточных факторов, при колебаниях гидратированности клетки, без
участия аппарата Гольджи и Са2+—независимо.
Регулируемый экзоцитоз отличается
от предыдущего необходимостью для запуска внеклеточного воздействия и четкой
стадийностью процесса. Каждая из стадий регулируется дифференцированно. Специфика
экзоцитоза определяется химической природой выделяемого (—мых) вещества,
невезикулярной или везикулярной формами его выведения.
Невезикулярный регулируемый
экзоцитоз. Различают типы невезикулярного регулируемого экзоцитоза с
частичной утратой клеточной мембраны и без нее. К первым относят апокриновый
тип секреции, например, коллоидных белков, и лемокриновый (липидных капель). Апокриновый
тип характеризуется тем, что синтез коллоидных белков в фолликулярных
эпителиальных клетках щитовидной железы, клетках Сертоли семенников, в ацинусах
слюнных желез, в желудке и кишке (муцины I, II) значительно увеличивает объем
клеток, компенсируемых микроворсинками и складками апикальной мембраны. Часть
секрета заполняет кончики микроворсинок, растягивает их мембрану, что
активирует механочувствительные миниС1——каналы, ионы хлора выходят,
деполяризуя плазмалемму. Это затем активирует более высокопороговые
потенциалочувствительные максиСl——каналы и вместе с хлором через них
выходят анионы N0з—,
Вг— и вода. При таких же значениях МП открываются механо— и
потенциалочувствительные К+—каналы. Выход ионов калия усиливает
деполяризацию, вызванную работой максиСl——каналов. Это вызывает вход Са2+ через
открывающиеся потенциалочувствительные Са2+—каналы и Са2+—зависимое
сокращение актина и апокрина. Вследствие этого происходит отшнуровывание части
микроворсинок с коллоидом, окруженным фрагментом клеточной мембраны.
При лемокриновой секреции
липидная капля (например, молочного жира в эпителии молочной железы) подходит к
плазмалемме и на расстоянии около 10 нм неполярные фосфолипиды мембраны и
осмофильные поверхности капли слипаются под воздействием сил
Ван—дер—Ваальса—Лондона, за этим следует облегание капли клеточной мембраной с
последующим отшнуровыванием. В адипоцитах и стероидогенных клетках на
поверхности липидных капель обнаружены фосфопротеины перлипины,
присутствие которых критично для лемокриновой секреции.
Без утраты части плазмалеммы
осуществляется экзоцитоз тех веществ, которые могут диффундировать через
мембрану или же транспортироваться с помощью определенных переносчиков. К ним
относятся газообразные секреты (O2, NO, NО2,
CO, CO2 и др.), которые могут выделяться через поры ряда помп
или диффузией по концентрационному градиенту. Протон—секретирующие клетки
беспозвоночных и позвоночных животных используют ряд сходных обменников и Н+—АТФаз.
Электролиты и вода, а также другие жидкости могут выделяться Са2+—зависимо
и Са2+—независимо. Основные нейротрансмиттеры с помощью
транспортеров могут не только накапливаться в клетках, но и секретироваться
ими.
Для секреции кислот у позвоночных и
некоторых беспозвоночных (например, одноклеточными железами подошвы ноги
брюхоногих моллюсков) используются комплексы транспортеров и обменников с
итоговым выведением воды и анионов. Так, секреция НС1 обеспечивается
транспортером выхNa+/ выxK+/вx2Cl—,
затем ионы хлора обмениваются на анион угольной кислоты (выхСl—/вхНСОз—), причем эти
выходящие ионы хлора позже участвуют в синтезе НСl. В клетке угольный анион образует кислоту (Н2СОз),
которая под действием карбоангидразы II распадается на H2O и СО2,
а вода — на гидроксил и секретируемый протон, участвующий в синтезе НС1.
Угольная кислота может также секретироваться в других клетках, для чего
используются обменники Na+/H+ Сl—/НСОз—и НСОз——каналы.
Примембранный внеклеточный ацидоз
приводит к активации протеаз, разрушающих соответствующие пептидные связи в
рецепторе или прогормоне, синтезированных в клетке и встроенных в плазмалемму
как интегральные белки. В результате этого происходит удаление с поверхности
клетки гормона, активированного отделением от прогормона, «отработавших»
лиганд—рецепторных комплексов или избыточных рецепторов.
Судьба последних в плазме крови
может измениться: они акцептируют гормоны, транспортируют и защищают их от протеаз
(например, соматотропин—связывающие белки).
Везикулярный
экзоцитоз. Синтезированные в клетке белки и пептиды подвергаются
двухэтапной сортировке. В цитоплазме она основана на присутствии в структуре
молекулы сигнального «мотива» и соответствующего заряда: если на С—конце
имеется последовательность аминокислотных остатков —Lys—Asp—Glu—Leu
(KDEL—мотив) или —Lys—Lys—, то в поляризованной секреторной клетке молекула
транспортируется от эндоплазматического ретикулума в cis—Гольджи;
если в
N—терминале молекулы содержится сигнальный мотив в виде —Arg—Arg—, то белок
переносится к плазмалемме и встраивается как трансмембранный с последующим
невезикулярным экзоцитозом.
Сигнальные мотивы в молекуле белка
обеспечивают связь его со специфическим внутриклеточным транспортером и
молекулой—акцептором в той или иной мембране. Белки с дисульфидными мостиками,
которые синтезируются на полирибосомах, транспортируются к участкам мембраны
ретикулума, локализованным перед аппаратом Гольджи. Они обогащены анионными
фосфолипидами, гликопротеинами и акцепторными белками. Это способствует
попаданию синтезированной молекулы в cis—Гольджи, откуда она переносится с
помощью специфических транспортеров в trans—Гольджи. Минуя ретикулум, в
цистерны могут попадать эндоцитосомально—лизосомальные комплексы белков.
Формирование везикул при экзоцитозе
начинается с сортировки и упаковки секреторных белков, обладающих четвертичной
структурой. Для этого необходимо повышенное содержание Са2+, ацидоз
(рН 4,5—5) и присутствие специфических для аппарата Гольджи кислых белков секрето—
и хромогранинов. Секрето— и хромогранины облегчают сортировку и упаковку
белков, акцептируя белковый продукт, а также протеазы. Последние в кислой среде
trans—Гольджи, а затем в везикуле осуществляют протеолиз молекул прогормонов и
самих гормонов. Такое превращение молекул показано в гепатоцитах для прогормона
фактора роста нервов и в аденогипофизарных кортикотропоцитах — для
проопиомеланокортина (предшественника кортикотропина) меланотропина и опиоидных
пептидов. Это приводит к одновременному выделению из клетки при регулируемом
экзоцитозе комплекса веществ: гормонов, хромогранина и их фрагментов. Кроме
того, в везикуле содержатся нейтральные фосфолипиды и липиды, в том числе
холестерин.
Следующие стадии процесса экзоцитоза
включают: транспорт везикулы к плазмалемме, селективная адгаезия (прилипание)
везикулы к определенному участку мембраны, слипание мембран везикулы и клетки,
образование фузионной поры и выведение секрета во внеклеточное пространство. В
реализации каждой стадии участвуют специфические белки, многие из них
полифункциональны и активируются через фосфорилирование протеинкиназами А и С
(соответственно цАМФ— и Са—зависимыми). Они встраиваются в мембрану везикулы по
мере продвижения к плазмалемме.
Роль транспортера и энергетического
донора играют ГТФазы, ближе к плазмалемме встраиваются Ras—подобные АТФазы,
которые участвуют и в селективной поставке везикул к плазмалемме. Ацидоз в
везикулах поддерживается встроенными в мембрану Н+—АТФазой и Н+/НСО3——обменником,
закачивающими протон в органеллу.
По осмотическому градиенту в
везикулу поступают вместе с водой ионы хлора, увеличивая размеры везикулы.
Кроме того, буферирующий ацидоз ион Са2+ удаляется в цитоплазму Са2+/Мg2+—АТФазой
и Са2+/2Н+—обменником. Это способствует увеличению
концентрации Са2+ в околовезикулярном пространстве и запускает
(через Са—связывающие белки) необходимые для экзоцитоза Са—зависимые процессы.
Очевидно, что выход кальция из
внутриклеточных депо, представляющий собой один из основных внутриклеточных
ритмов, и/или вход иона через каналы плазмалеммы при ее деполяризации,
растяжении, лиганд—рецепторном связывании являются мощным и
экзоцитоз—стимулирующими факторами. Поэтому белки, участвующие в конечных
стадиях экзоцитоза, являются Са2+—связывающими или Са2+—каналами.
Поскольку в образовании поры участвуют не только белки, но и фосфолипиды
мембраны, по крайней мере один из белков (Ехо1/р14—3—3) обладает функциями
фосфолипазы А2, гидролизующей анионные фосфолипиды.
Сборка комплекса установки начинается
с входа Са2+ через канал, образованный аннексином, белком,
обладающим свойствами АТФазы. Фузионная пора отличается от канала тем, что
после образования она увеличивает свой диаметр вплоть до полного встраивания
мембраны везикулы в плазмалемму. Через пору по осмотическому и рН—градиентам из
околоклеточного пространства начинают поступать вода и Са2+, что
быстро увеличивает объем везикулы и растягивает ее мембрану, вызывая затем
сокращение везикулы с выбросом содержимого из клетки. В силу различия знака мембранного
потенциала везикулы и плазмалеммы в точке установки сама адгезия вызывает
генерацию спайкового разряда в возбудимых клетках, что способствует
выравниванию потенциала между встроенным фрагментом бывшей везикулярной
мембраны и соседними участками плазмалеммы.
В эндотелиальных клетках к
апикальной мембране может поставляется цепочка везикул, взаимодействующих между
собой, а последняя везикула — адгезировать к базолатеральной мембране, завершая
таким образом формирование канала трансцитоза. В некоторых пресинаптических
окончаниях везикулы образуют более сложные комплексы. Но в том и другом случае
агрегирование везикул направлено на быстрое выделение из клетки больших
количеств секрета.
В группах секреторных клеток
синхронизация выведения веществ осуществляется благодаря синаптическим или
щелевым контактам между клетками. Те и другие активируются потенциал— и
Са—зависимо. Белки коннексины, образующие щелевой контакт, изменяют свою
стереоструктуру при деполяризации и связывании кальция, т. е. представляют
собой потенциал— и Са—чувствительный Са2+—канал, по которому ионы
могут переходить от клетки к клетке, вовлекая их в экзоцитоз. Такие «кальциевые
волны» описаны в костной ткани, в эндокриноцитах, эндотелии и энтероцитах.
Особое значение они могут иметь в многоклеточных железах.
Всем живым
клеткам свойственна способность активно реагировать на внешние воздействия. Реактивность
(раздражимость) особенно отчетливо выражена у нервных, мышечных и железистых
клеток. Их реакции проявляются в изменении электрического состояния, а также в
сокращении (у мышечных) и секреции (у железистых клеток). Реактивность этих
клеток лежит в основе функции нервной системы, двигательных аппаратов и желез
организма животных и человека.
Возбудимость нервных и
мышечных клеток, их способность генерировать потенциал действия связаны со
свойствами их поверхностной мембраны, в которой имеются ионные каналы с
потенциалозависимыми воротами. В покое мембрана этих клеток имеет закрытые
каналы для Na+ и открытые
— для К+. Непрерывная работа ионного насоса создает и поддерживает
высокую концентрацию К+вн и низкую Na+BH. В этой ситуации небольшая утечка
К+ наружу формирует поляризацию мембраны («+» снаружи, «—» внутри).
Это мембранный потенциал покоя (МПП).
При электрическом
раздражении открываются каналы Na+ (в некоторых клетках — Са2+)
и за счет их входа внутрь клетки поляризация мембраны извращается. Это потенциал
действия (ПД). Его длительность составляет несколько миллисекунд.
Прекращение
ПД связано с закрытием (инактивацией) Na—каналов и с открытием дополнительных
каналов для K+, выход
которого возвращает мембранный потенциал к исходной величине. Во время ПД
электровозбудимость отсутствует (состояние рефрактерности). После ПД
остается некоторый избыток Na+ в клетке, который устраняется работой
ионного насоса, откачивающего из клетки Na+ в обмен на наружный К+.
Возникнув в
какой—либо точке, ПД распространяется по нервному или мышечному волокну за счет
раздражающего действия локального тока, возникающего между возбужденным
и соседним участками. Скорость распространения возбуждения зависит от
соотношения значения локального тока и электровозбудимости мембраны. Скорость
эта тем больше, чем толще проводник (волокно). В миелинизированных
нервных проводниках распространение ПД особенно быстро, так как в них ПД как бы
прыгает от одного оголенного участка волокна (перехвата) к другому (сальтаторное
проведение). В толстых миелинизированных волокнах скорость проведения
достигает 100—120 м/с.
Контакты
между нервными клетками и между нервными клетками и другими клетками—мишенями
называют синапсами. Синапсы передают либо возбуждающий, либо тормозный
сигнал. Существуют электрические синапсы, в которых сигнал передается
локальным электрическим током. Большинство синапсов относится к химическому
типу. В них сигнал передается в форме физиологически активного вещества — медиатора
(трансмиттера). Это вещество синтезируется в «передающей» пресинаптической
клетке, накапливается в ее нервных окончаниях, выбрасывается из них в синаптическую
щель и воспринимается специфическими рецепторами постсинаптической клетки.
Активация названных рецепторов либо прямо открывает ионные каналы, приводя к
электрической реакции, либо воздействует на метаболизм клетки через специальные
ферментные системы и вторичные передатчики (мессенджеры), что также
может влиять на ионные каналы.
В
возбуждающих синапсах рецепторы открывают каналы для Na+ или Са2+,
что частично деполяризует мембрану и вызывает ПД (возбуждение).
В тормозных
синапсах рецепторы открывают каналы для К+ или Сl—, движение которых по их градиентам
нормализует или увеличивает МПП, т. е. тормозит, успокаивает клетку.
Отработанный медиатор либо разрушается специальным ферментом, либо всасывается
обратно в нервное окончание.
Нервные проводники осуществляют
транспорт веществ. Этот процесс (аксонный транспорт) имеет скорость от
1—2 до 400 мм/сут. Аксонный транспорт (антероградный и ретроградный}
важен для осуществления трофических процессов, а также для восполнения запасов
квантов медиатора в нервном окончании. Через синапсы помимо описанных сигналов
передаются трофические влияния (с помощью специальных агентов белковой
природы). В трофике нервной системы, а также в обмене медиаторов и ионном
гомеостазе тканей принимают участие глиалъные клетки.
В нервной системе животных и
человека нейроны формируют нервные сети, обладающие рядом общих свойств {дивергенция
и конвергенция нервных путей, связанные с ними пространственное
облегчение и окклюзия; наличие ряда тормозных механизмов).
Основным вариантом реакции нервной
сети на внешний стимул является рефлекс, представляющий собой
возбуждение определенных рецепторов, афферентных нервных проводников, центра,
эфферентных проводников и рабочего органа (эффектора). Взаимодействие (борьба) антагонистических
рефлексов осуществляется с помощью реципрокного (сопряженного) торможения
в центре.
Мышечные волокна помимо
электрических реакций на нервные стимулы развивают сократительные ответы.
Сокращения мышечных волокон представляют собой результат встречного движения
толстых (миозиновых) и тонких (актиновых), нитей, расположенных в
саркомерах миофибрилл. Это движение обеспечивается работой миозиновых мостиков,
использующих энергию АТФ. В покое этот механизм не работает. Но при
возбуждении, когда мышечный ПД провоцирует выброс Са2+ из
саркоплазматического ретикулума, Са2+ снимает препятствие работе
мостиков и сокращение начинается. Окончание сокращения обеспечивается обратным
захватом Са2+ в саркоплазматический ретикулум.
Одиночный ПД обеспечивает одиночные
сокращения, серия частых ПД — тетанус (как результат суперпозиции
одиночных сокращений). Отмеченное правило применимо к большинству мышц
позвоночных животных (хотя у гладких мышц есть особенности). Но в фибриллярных
мышцах насекомых один ПД мышцы дает не одно, а множество очень быстрых
сокращений. Этот «миогенный» ритм связан с тем, что названные мышцы, будучи
возбужденными и, соответственно, сокращенными, мгновенно теряют напряжение
(тягу), если освобождаются от «груза», и, наоборот, снова восстанавливают
сокращения в ответ на нагрузку. В этих условиях при связи с упругим
экзоскелетом насекомого возбужденные мышцы—антагонисты тянут попеременно, что и
обеспечивает высокочастотные махи крыльев (при редких ПД мышц). Запирательные
мышцы моллюсков в ответ на короткую серию нервных импульсов генерируют
краткую пачку ПД и при этом производят очень длительное сокращение.
Сократительные механизмы фибриллярных мышц и запирательных мускулов,
по—видимому, отличаются от изученных в обычных мышцах.
Электрический механизм (работающий
в нервных проводниках, в постсинаптических мембранах и в мышечных волокнах)
имеет специальное и чрезвычайное развитие в электрических органах рыб,
которые могут за счет последовательного соединения клеточных батарей
генерировать импульсы напряжением до 500—1000 В.
Сократительные
механизмы присущи не только мышцам. В сходной форме они существуют и действуют
в примембранных структурах, жгутиках и ресничках, обеспечивающих двигательные
функции у простейших, и у ряда специализированных клеток высших животных и
человека.
Деятельность
секреторных клеток, направленная на стабилизацию процессов обмена веществ и
энергии, осмотического давления, рН и объема, сходна с подобной деятельностью у
других клеток. Однако специфика секретируемого вещества (газы, жидкости,
липиды, белки, моноамины и т. д.), интенсивность его синтеза и выведения
определяют особенности клеточных структур и функций секреторных клеток. К ним
относятся: большее разнообразие систем трансмембранного переноса веществ —
предшественников секрета и выделения синтезированных продуктов; широкое
использование гидрофильных ионов для регуляции осмотического давления ,
рН и объема секреторной клетки; усложнение систем внутриклеточной сортировки
молекул и везикул (эндо—, пино—, фагосомальных и экзоцитозных); более полное
использование изменений мембранного потенциала как инструмента быстрой
регуляции всех стадий секреторного процесса.
Авдонин П. В., Ткачук В. А. Рецепторы
и внутриклеточный кальций. М., 1994.
Бернштейн Н.А. Физиология движений и активность.
М., 1990.
Гехт Б. М. Теоретическая и клиническая
электромиография. Л., 1990.
Жуков Е. К. Очерки по нервно—мышечной
физиологии. Л., 1969.
Ичас М. О природе живого: механизмы и смысл. М., 1994.
Катц Б. Нерв, мышца и синапс. М., 1968.
Крутецкая 3. И. Лонский А. В. Биофизика
мембран. СПб., 1994.
Куффлер С., Николе Дж. От нейрона к мозгу. М.,
1979.
Кэндел Э. Клеточные основы поведения. М.,
1980.
Лапицкий В. П. Сравнительная физиология сократительного
аппарата. СПб., 1998.
Милешковский Б. Ю. Ноздрачев А. Д. Торможение
двигательной активности. Стволовые механизмы. СПб., 1998.,
Наследов Г. А. Тоническая мышечная система
позвоночных. Л., 1981.
Ноздрачев А. Д., Янцев А. В. Автономная
передача. СПб., 1995.
Общая физиология возбудимых мембран. Руководство по
физиологии. М., 1975. Общая физиология нервной системы. Руководство по
физиологии. Л., 1979.
Свидерский В. Л. Основы нейрофизиологии насекомых.
Л., 1980.
Скок В. И., Шуба М. Ф. Нервно—мышечная физиология.
Киев, 1986.
Уголев А. М. Эволюция пищеварения и принципы
эволюции функций. Элементы современного функционализма. Л., 1985.
Угрюмое М. В. Механизмы нейроэндокринной
регуляции. М., 1999.
Физиология животных. В 2 т. / Под ред. Р. Эккерта и др. М.,
1992.
Физиология человека. В 2 т. / Под ред. В. М. Покровского, Г.
Ф. Коротько. М., 1997.
Физиология человека. В 3 т. / Под ред. Р. Шмидта, Г. Тевса.
М., 1996.
Хилл А. Механика мышечного сокращения. Старые и новые опыты.
М., 1972.
Ходжкин А. Нервный импульс. М., 1965.
Шаповалов А. И. Механизмы синаптической передачи.
Избранные труды. СПб., 1997.
Шеперд Г. Нейробиология. В 2 т. М., 1987.
Шмидт—Ниельсен
К. Физиология животных. Приспособление и среда. В 2 кн. М., 1982.
Экклс Дж. Физиология
синапсов. М., 1966.